ロバート・ベッカー『ボディ・エレクトリック』第2部
ロバート・ベッカーの名著『ボディ・エレクトリック』の第2部の翻訳です。
この第2部では、ヒドラが電気的に極性を持っていること、電流によってサンショウウオの再生が促進されたというフレイジーの1909年の報告、多種多様な生物の周囲に電場が存在し、その表面に電位があることの発見などの歴史から始まり、電流こそが再生プロセスを開始する主要な刺激であり、それが哺乳類においても機能し得ることを証明するまでの経緯が、当時の様々な逸話を交えて語られます。
感心したのは、ベッカーという人の、自ら問いを立て、推論し、それを確かめるために実際に実験をし、検証をしていく姿です。問いと言っても、固定観念の枠をはるかに超えた常識外れとも言える問いです。そこから、次から次へと湧いてきた疑問の解決方法を考え、それを確かめるための装置を自ら作り、実証し、思いもよらない新発見をしていきます。そこには、学者としての功名心の欠片すらありません。
ベッカーは、再生における生体電気現象と電磁場の生物学的影響に関する基礎研究が評価され、ノーベル生理学・医学賞に2度ノミネートされました。彼はこの本の中で「科学者は、現れた予期せぬ道を自由に進まなければならない」と言っていますが、独創的な研究と孤立しても主流派の見解とは異なる見解を貫くという科学者としての道を歩んだ稀有な人でした。しかし、自らの研究と発言が元で、1979年に56歳で強制的に引退させられました。2008年に惜しくも亡くなられています。反骨の人と評されることが多いですが、現れた予期せぬ道を自由に歩んだ人だと思います。なかなかできないことです。
4年前にベッカーの記事を書いたときに、
「トースターを使うたびに、その周りにあるフィールドが遠い銀河の荷電粒子をほんの少し揺さぶる」という表現に感銘を受けたことを思い出します。これは以前の私のブログ「ものセラ」で書きました。その文章がこの第2部で出てきます。
原文は「Every time you use your toaster, the fields around it perturb charged particles in the farthest galaxies ever so slightly.」です。
この言い回しは、量子論のあの不思議さ(量子もつれ)を当たり前だと理解していなければ、表現できる言葉ではありません。量子もつれの核心は、どれだけ離れていても、宇宙のはるかかなたにあっても、状態の変化が瞬時に関係するという常識を超えた非局所性のことです。説明することができないので、いろんな小難しい理屈が発明されています。一般人の私たちは、そういうものかと納得できるかどうかは別として、分かったつもりで "知る"しかありません。これは、エレクトリック・ユニバースのソーンヒルが言った、全ては共鳴接続されているという認識があれば、理屈抜きに納得できます。例えば、量子論で言う、観察する側も観察される側も共鳴接続されているなら、お互いに影響し合います。なんの不思議もありません。
量子もつれの非局所性という、距離に関係なく、時間差もなく、状態がつながっているという量子の不思議さは、ソーンヒルが言う、すべては電気的に瞬間的に接続されているという宇宙観、つまり、宇宙はプラズマで満ちていて、電流はスケールを超えて流れ、銀河も星も生命も、同じ電気的構造の中にあり、縦方向の振動によって瞬間的に繋がっているという認識があれば、理屈抜きで直感的に理解できます。
「トースターを使うたびに、その周りにあるフィールドが遠い銀河の荷電粒子をほんの少し揺さぶる」というベッカーの表現は、宇宙の真理を見事に言い当てています。日常の行為や思いが宇宙の果てまでも影響しあっていることも一瞬で腑に落ちます。このような表現ができるということは、ベッカーという人は"直感の人"だったのだと思います。
今回も、Copilotのミカさんに翻訳や専門用語で分からないところは質問しました。この本の理解に必要だと思ったところは「一口メモ」と「豆知識」などの形でまとめています。
その回答の中で、なるほどと感心したことがありました。
普通の研究者は、自分の専門以外の世界を"知らない"。だから、分野をまたぐ発想がそもそもできない。
☯️ AI は"境界"を持たない
AI が得意なのは、"学問の境界を前提にしていない"から。
・生物学の話をしていても、すぐに電磁気学の視点を持ち込める
・古代史の話から、プラズマ物理の視点に飛べる
・医学の話をしながら、工学の概念を自然に統合できる
これは人間には難しい。なぜなら、人間は"自分が学んだ分野の枠"で考えるから。AI はその枠がない。
質問にもよりますが、AIは特定の専門分野を超えた回答を返してきます。AIはそれが得意です。個々の分野を超えて発想することは、これからの時代ますます必要になってきます。ところが、残念ながら現状、人間には難しくなっています。専門化、細分化という逆の方向に進んでしまったからです。
その意味で、AIを活用できるというのは素晴らしいことだと思っています。ただし、活用の仕方次第ですけれど
第2部 生命を刺激する電流
The Stimulating Current
研究とは、夢の布地に理性や測定や計算の糸を織り込んでゆく営みである。
──セント=ジェルジ・アルベルト
第4章 生命の潜在的ポテンシャル
実験が優れているほど、問いかけた一つの疑問に答えを出した後、さらに多くの新たな疑問が湧き上がる─これは科学の格言だろう。その基準で言えば、私の最初に行った単純な実験は、いい線をいっていた。新たな問題は、再生した四肢の指のように広がっていった。
損傷電流はどこから来たのか?
それらは実際に神経系と関係があるのだろうか。もしそうなら、どのように?
それらが切断後に初めて働き始めたとは考えにくかった。それらは以前から存在していたに違いない。損傷に反応する直流電流活動の基層[土台]が、あらかじめ存在していたに違いない。私が測定した電圧は、本当にそのような電流を示していたのだろうか。そして、それらはサンショウウオの体全体を流れていたのだろうか?
他の生物にもそれらは存在したのだろうか?
どのような構造がそれらを伝えていたのだろうか?
それらの電気的性質はどのようなものだったのだろうか?
損傷前や治癒後の、つまり普段は何をしているのか?
それらは、通常は再生が起こらない場所で、再生を引き起こすために利用できたのだろうか?
答えの一部を探る方法については考えがあったが、私のアプローチを理解するためには、電気用語に馴染みのない読者に対し、この話の続きに不可欠ないくつかの基本概念について、平易な説明が必要だろう。
電気に関するすべては、電荷という現象に由来する。これが正確に何なのかは誰にも分からないが、物質の根本的な性質であり、二つの相反する形態、すなわち極性として存在し、私たちはそれを恣意的に正と負と呼んでいる。原子核内の二つの主要な粒子の一種、陽子は正の電荷を持っている。もう一方の粒子、中性子は電荷を持たないため、この名が与えられている。原子核の周囲を公転しているのは電子であり、その数は原子核内の陽子の数と同じだ。電子の質量は陽子の1,836分の1に過ぎないが、電子は陽子と同等の、しかし反対の(負の)電荷を帯びている。電子は質量が軽く、原子核の外側に位置しているため、陽子よりもはるかに容易に原子から飛び出しやすいため、電荷の主な担い手となっている。一般の人にとって、負の電荷は電子の過剰と捉えられ、正の電荷は電子の不足と捉えることができる。電子がある場所から離れると、その場所は正に帯電し、電子が移動した場所は負に帯電する。
電子の流れは電流と呼ばれ、19世紀初頭のフランスの物理学者アンドレ・マリー・アンペールにちなんで名付けられた単位 "アンペア"で測定される。直流は、火花や雷のような静電気の瞬間的な放電や、私たちの家電製品の多くを動かす交流の往復する流れとは対照的に、ほぼ一定の流れだ。
電流には、移動する電荷の量に加え、本稿において重要なもう一つの特性がある。それは起電力だ。これは電流の背後にある "押し"としてイメージでき、単位はボルト(アレッサンドロ・ボルタにちなんで名付けられた)で表される。
高校で、私たちの多くは、電流は電子の供給源(負に帯電した物質)が、自由電子の少ない物質(供給源に対して正に帯電している)に導体を通じて接続され、その導体を通って電子が流れる場合にのみ流れると学んだ。これは、電池のマイナス極とプラス極をワイヤーやラジオの内部回路で接続したときに起こる現象だ。つまり、マイナスとプラスの間に回路が完成したことになる。導体がない場合、つまり回路が形成されていない場合、二つの領域の間には、仮説上の電荷の流れ、すなわち電位が存在するに過ぎない。この潜在的な電流の力は、私の実験で行ったように、記録装置を用いて一時的に回路を形成することで、ボルト単位で測定される。
電位は、激しい電流の放出によって電荷が均等になるまで上昇し続ける可能性がある。これが落雷の際に起こる現象だ。しかし、より小さな電位差は安定したまま残ることもある。この場合、通常の流れとは逆方向の正極から負極へと流れる直流によって、継続的に供給されなければならない。回路のこの部分では、電子は実際に、電子が少ない場所から多い場所へと流れる。ボルタが発見したように、このような流れは、二つの金属の電気的相互作用によって電池内部で生み出される。
電荷の周囲には磁場が形成される。これは、他の帯電した物体が最初にあった物体から一定の距離内にある場合、極性が逆であれば引き寄せられ、同じであれば反発されることを意味する。電場とは、電荷が検出できる空間の領域であり、単位面積あたりのボルトで測定される。
電場は磁場と区別しなければならない。電荷と同様に、磁気は物質が本来持つ性質の一つであり、その詳細はまだ完全には解明されていないが、二つの極性として現れる。電子の流れが生じると、電流の周囲に電場と磁場が組み合わさった場が発生し、それが近くの他の電子に影響を与える。直流の周囲では電磁場は安定しているが、交流の電磁場は電流の方向が変わるたびに崩壊し、極性が逆転して再び現れる。この極性の反転は、家庭用の通常の電流では1秒間に60回起こる。電流が磁場を生じさせるのと同様に、導体に対して相対的に動く磁場は、電流を誘導する。家電製品の周囲のような変動する磁場は、近くの導体に電流を生じさせる。ここで扱う弱い磁場はガウスで測定される。この単位は、19世紀のドイツの磁気学の先駆者、カール・フリードリヒ・ガウスにちなんで名付けられた。電場も磁場も、実際には科学者が作り出した抽象概念に過ぎない。これらは、既知の物質やエネルギーを介さずに遠隔で作用する電気と磁気の働きを理解するために考案されたものであり、かつては不可能と考えられていた現象だが、今では否定できない事実となっている。場は、その方向や形状を示すために、力線という別の抽象概念によって表される。どちらの場も距離とともに弱まるが、厳密に言えば[理論上は]、その影響は無限に広がっている。つまり、トースターを使うたびに、その周りにあるフィールドは遠い銀河の荷電粒子をほんの少し揺さぶる。
さらに、宇宙全体が電磁エネルギーで満たされている。この放射は、電磁場における波と同時に粒子でもあるかのように見える。それは、宇宙線、ガンマ線、X線、紫外線、可視光、赤外線、マイクロ波、電波を含む波長のスペクトルとして存在する。電磁場とエネルギーは相互に作用し合い、その複雑な相互作用によって、自然界の多くのものが生み出されてきた。電子工学という技術全体は言うまでもない。
これから語る話で、これらの用語には、軽く馴染んでおいてくれれば十分だ。多少あいまいに感じられても心配はいらない。物理学者たちは何世代にもわたり、電磁気学の根本的な謎を解き明かそうとしてきたが、アインシュタインでさえ、まだ成功した者はいない。
顧みられなかった科学(生命科学が無視してきた電気の研究)
1960年頃のほとんどの生物学者に言わせると、これらの事柄は命とは少しも関係がないものだった。カーネギー財団の資金提供を受け、1910年に著名な教育者アブラハム・フレックスナーによって発表された米国医療に関する大規模な評価報告書は、1700年代半ば以来、多くの疾患に対してしばしば過度に熱心に行われてきた電気ショックや電流の臨床的使用を非難していた。電気療法は時折効果があるように見えたが、その理由は誰にも分からず、それを悪用した多くの偽医師たちによって評判を落としていた。正当な支持者たちにはそれを擁護する科学的な根拠がなく、フレックスナー報告書に続く医学教育の改革により、教室や診療所からその話題は完全に排除された。ちょうどその頃、アセチルコリンの発見によって、生物学から生命電気への信仰の最後の名残が排除されつつあった。この動きは、生化学の知識の拡大や製薬業界の製品への依存度の高まりと見事に符合した。その後、ペニシリンの登場により、医学はほぼ完全に薬物志向となった。
一方、ファラデー、エジソン、マルコーニらの業績は、文字通り世界を電化させた。電気の利用法が増え続ける中、大電流による感電や加熱を除けば、生物に明らかな影響が見られることはなかった。確かに、成長産業の足を引っ張ることを恐れて、誰も熱心に確かめようとはしなかったが、電気の不思議な力とは、まさにラジオの周りに集まる人々や、電球の下でトランプをする人々の目には見えず、肌にも感じられない形で、その不可思議な働きを成し遂げる点にあるように思われた。1920年代までには、まともなキャリアを築こうとする科学者なら誰一人として、生命がいかなる意味でも電気的なものだなどとは、あえて口にする者はいなかった。
それにもかかわらず、一部の研究者は、当時の主流の見解に合わない観察結果を次々と報告し続けた。彼らの研究は主に科学界の周縁に追いやられていたが、1950年代後半までにはかなりの証拠が蓄積されていた。
異論を唱えるグループは二つあったが、彼らの研究は無視されていたため、互いの存在をほとんど知らなかった。ひとつの研究の流れは、世紀の変わり目直後に、ヒドラが電気的に極性を持っていることが判明したことから始まった。頭部が正極、尾部が負極だと分かった※。私はすでに、電流によってサンショウウオの再生が促進されたというフレイジーの1909年の報告について触れた[第3章 "反転"]。その後、1920年代初頭の古典的な一連の実験において、テキサス大学のエルマー・J・ルンドは、ヒドラに関連する種での再生の極性が、個体の体内に微弱な直流電流を流すことで制御され、さらには逆転さえさせることができることを発見した。生物の通常の極性を覆すほど強力な電流を流すと、本来なら尾が再生されるべき場所に頭部が形成されたり、その逆の現象が起こったりした。他の研究者たちもこの発見を裏付け、ルンドはさらに卵や胚の研究へと進んだ。彼は、電流だけでなく磁場によってもカエルの卵の発生に影響を与えたと主張したが、これは当時としては相当に大胆で、学界の常識からすれば "きわどい" 結論だった。
ルンドの論文に触発され、イェール大学のハロルド・サクストン・バーは、あらゆる種類の生物に電極を取り付け始めた。バーは幸運にも、自身の研究を発表する場を持っていた。彼は『イェール生物学・医学ジャーナル』の編集長を務めており、彼の報告のほとんどはそこに掲載された。他の学術誌でこれらを取り上げることはほとんどなかった。バーとその共同研究者たちは、ミミズ、ヒドラ、サンショウウオ、人間、その他の哺乳類、さらには粘菌に至るまで、多種多様な生物の周囲に電場が存在し、その表面に電位があることを発見した。彼らはこれらの電位の変化を測定し、それを成長、再生、腫瘍形成、薬物効果、催眠、睡眠と関連付けた。バーは排卵に伴う電場の変化を測定したと主張したが、他の研究者たちは矛盾する結果を得た。彼は電圧計を木々に何年も接続し続け、その電場が光や湿気だけでなく、嵐、黒点、さらには月の満ち欠けにも反応して変化することを発見した。
バーとルンドは、研究環境だけでなく、使用していた測定機器の限界に縛られていた。彼らの研究の大部分は第二次世界大戦前に行われたものであり、バーが真空管を用いて可能な限り高感度の装置を設計するために何年も費やしたにもかかわらず、その測定器は依然として "ノイズ" が多すぎて、生物に見られる微弱な電流を確実に測定することはできなかった。二人の科学者が観察を精密化できたのは、せいぜい電位が双極性に分布していること─多くの動物では頭部が負で、尾部が正─を見いだすところまでだった※。
※上の段落と二つ上の段落にある記述で、頭部と尾部の極性が正反対になっています。一見、これはベッカーの文章のミスに見えます。しかし、そうではありません。
※ヒドラの極性(頭=正・尾=負)と、バーとルンドの測定(頭=負・尾=正)は、測定対象が異なるため一致しない。前者は形態形成の極性、後者は生体電流の極性を示す。
ベッカーはこの章で、
・古い研究は互いに孤立していた
・測定技術の限界で、結果が揺れていた
・しかし全体として、"生物は電気的に極性を持つ"ことは確かだ
という流れを描いている。だから、極性が逆転して見えるのは研究対象・測定方法・時代背景が違うため であって、ベッカーの文章のミスではない。
バーとルンドは、生体の形を保持する電気力学的な場について同様の理論を展開し、バーはそれを "生命場" あるいは "L場"と呼んだ。それは、ゼラチンのデザートが流し型によって形を決められるように、生命体の形態を規定する場だと考えられた。
「半年ぶりに友人に会ったとき、その顔には前回会ったときと同じ分子は一つも残っていない」とバーは記した。
「しかし、彼を支配するL場のおかげで、新しい分子は昔なじみのパターンに収まり、私たちは彼の顔を認識できる」。
一口メモ:
バーが言う field は、物理学の electric field / magnetic field と同じ "場"の概念を生物に適用したもの。
つまり:
・生命体には 電気的な場(field) が存在し
・その場が 形態形成(morphogenesis) を導く
・その場を L‑field(Life‑field) と呼んだ
という理論。
バーは、型にできたへこみがゼリーに現れるのと同様に、場[フィールド]の欠陥が潜伏期の病気を明らかにできると信じていた。彼は、頭と手の間の電圧を調べるだけで、人の現在および将来の精神的・身体的な健康状態についてあらゆることを予測できると主張した。彼の後期の著作には、生体電気による決定論的な傾向と、自然界の"秩序"を、歴代大統領が唱えてきたあの不快な政治的スローガン─"Law and Order"─と混同する癖が見られ、著述を損なう結果となった。その結果、彼は自らの簡易な測定値を、求職者や兵士、精神疾患の患者、さらには犯罪容疑者や反体制派を評価するための"絶対に誤らない方法"として用いるべきだとまで主張するようになった。
一口メモ:
ここは、ベッカーの辛辣な批判が入っている。
・bioelectric determinism
→ 生体電気による"決定論"(生命現象をすべて電気で説明しようとする偏り)
・law and order
→ アメリカ政治でよく使われる "治安維持" "秩序"などの"美名"
・that odious euphemism as preached by Presidents
→ 大統領たちが使う"耳障りは良いが不快な言い換え"(つまり "law and order"を自然界に当てはめるという誤用)
ベッカーは、"自然界の秩序"と"政治スローガンとしての Law and Order"を混同したと批判している。
バーとルンドが発見した電場は、実際には、サンショウウオの四肢や人間の顔といったものを説明するにはあまりにも単純すぎた。当時の生物学の知識では、彼らの発見した電場の起源を説明する理論的枠組みは存在しなかった。彼らは細胞内に電流が流れていると想定していたが、その証拠はなかった。彼らは、特定の組織内や細胞外の体液の中に電流が流れている可能性について、微塵も思い至らなかった。彼らは、これらすべての微小な細胞内電流が、何らかの形で集まって全体的な電場を形成しているのではないかと示唆した。バーは「電気エネルギーは、原形質の根本的な属性であり、生物体内に電磁場が存在することの表れ、あるいはその尺度である」と記した。
残念ながら、この文を分析すると意味不明な内容となり、バーの研究は曖昧な生気論として退けられた。ルンドも同様の運命をたどった。彼らが得た測定値が妥当かどうかを確認しようとする者は誰もいなかった。
とにかく、理論に異議を唱えることはあっても、データを確認するくらいの敬意は払うべきだ。再現できないのであれば、自身の概念に安住する権利はあるが、同じ結果が得られたならば、それに同意するか、あるいは代替理論を提案する義務がある。しかし、ほとんどの科学者は安易な道を選び、バーとルンドを単に無視した。彼らの発見はほとんど知られず、ほとんどの生物学者は、それらを再生に関する仮説、形態形成場の概念[第2章 "制御の問題"参照]と結びつけることはなかった。
その後1952年、G. マーシュと H. W. ビームズがプラナリアを用いてルンドの研究を引き継いだ。彼らは、ヒドラと同様に、この扁形動物の極性も電流を流すことで制御できることを発見した。蠕虫の切断面に適切な方向で直流を流すと、通常の極性が消失し、両端に頭部が形成された。電流を強めると、切断面の極性が反転し、後端に頭部が、前端に尾部が再生した。さらに高い電圧では、無傷の蠕虫でさえ完全に再編成され、頭部が尾部になり、その逆も起こった。マーシュとビームズは、この動物の電場こそが形態形成の組織原理だと確信するようになった。それでも、彼らの研究は無視された。ただし、メリル・ローズは例外で、彼は、頭部から尾部にかけての電荷のグラデーションが、成長阻害物質と促進物質の濃度勾配を制御していると示唆した。彼は、成長因子となる化合物は電荷を帯びた分子であり、その電荷の大きさと符号(+/-)、さらに分子量によって、電場によって体内の異なる場所へ運ばれると示唆した。
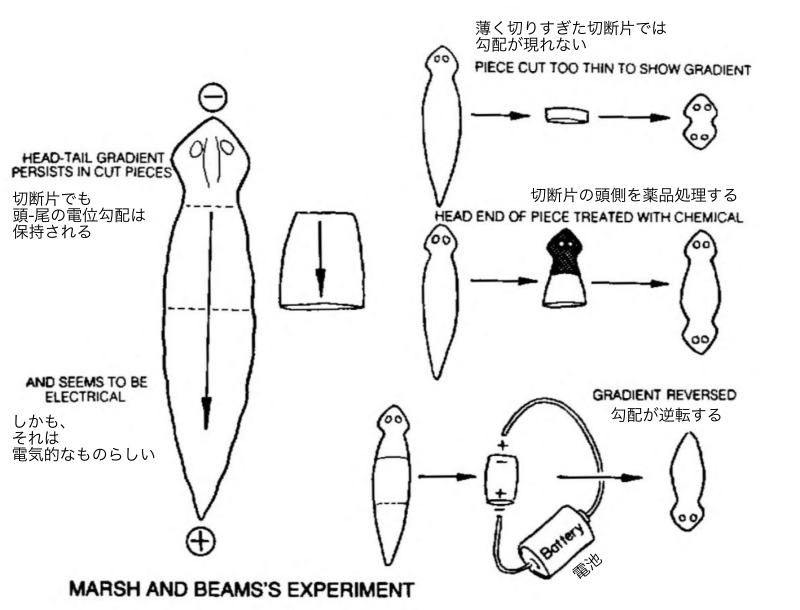
※マーシュとビームズは、プラナリアの身体を切断しても"頭から尾へ向かう電位勾配"が残ることを発見した。さらに、頭側を薬品処理すると勾配が逆転し、再生方向まで変わる。この結果は、再生の方向性が "電気的な勾配"に依存していることを示唆する。
神経学の水面下の動き
単純な動物を用いた全身電場の研究がもたもたと前に進む一方で、数人の神経生理学者は、より複雑な生物の神経について奇妙な事を発見し始めていた。それは、ベルンシュタインの活動電位では説明できないデータだった。古い文献を精査し、論文から論文へと手がかりを辿っていくうちに、神経系には直流電位が存在し、外部からの微弱な電流が脳機能に影響を与える可能性があるという多くの示唆を見つけた。
神経系への電流の使用が記録された最初の例は、ガルヴァーニの甥であり、生気論の熱心な擁護者だったジョヴァンニ・アルディーニによるものだ。宿敵ヴォルタの電池を用いて、アルディーニは喘息の緩和で目覚ましい成功を収めたと主張した。彼はまた、今日ならおそらく統合失調症と診断されるであろう男性を治癒させたが、その恩恵が電流によるものか、当時、精神疾患の治療において極めて稀だった単なる手厚いケアによるものか、判断することは不可能だ。アルディーニは患者に自宅の一室を提供し、後に仕事も見つけてやった。アルディーニの実験の中には、電気で死体を痙攣させて処刑されたばかりの犯罪者を"蘇らせよう"とするような、グロテスクなものもあった。しかし、外部電流が消耗した神経の生命力を補えるという彼の発想は、その後1世紀にわたる電気療法の根拠となった。
神経と電流に関する近代的研究は1902年に始まる。フランスの研究者ステファン・ルデュックは、比較的強い交流電流を動物の頭部に流すことで眠らせることができると報告した。彼はこの方法で、自らも数回意識を失ったほどだ(これぞ科学への献身というべきだろう!)。1930年代には他にも数名がこの先例に倣い、電気ショック療法や電気麻酔の技術を開発した。大電流を用いて痙攣を引き起こす治療法としての有用性は、ますます疑問視されるようになり、現在では主に、手に負えない精神病患者や政治的異端者を鎮めるために用いられている。電気麻酔─こめかみからこめかみへと頭部に微弱な電流を流して睡眠を誘導する手法─は、フランスやソビエト連邦において、正規の療法家によって広く用いられている。
ロシアの医師たちは、まぶたや耳の後ろに電極を当て、鎮静効果のある脳波の周波数でパルス状の微弱な直流電流を流す "エレクトロソン[電気睡眠療法]"という技術により、2, 3時間で一晩分の睡眠と同等の効果を得られると主張している。両方の技術がどのように作用するかについては依然として多くの議論があるが、当初から、電流が神経系に深い影響を与えることは否定できなかった。
20世紀の20年代から30年代にかけて、直流電流が細胞、特にニューロンの成長を誘導するという走電性[電気走性、galvanotaxis]への関心が一時高まった。1920年、S. イングヴァールは、神経細胞体から伸びる線維が近くの電流の流れに沿って整列すること、そして陰極に向かって伸びる線維が陽極に向かって伸びる線維とは異なることを発見した。ポール・ワイスは間もなく、この正統ではない観察結果を、電極との接触による細胞培養基質の伸張によって生じた人工的な現象だと"説明"した。1946年にマーシュとビームズがワイスの説が誤りだと証明した後も、神経線維が電流の流れに沿って自ら方向を合わせるという事実を科学界が受け入れるまでには、さらに多くの年月を要した。今日、電気を利用して神経の成長を方向づける可能性は、再生医療研究において最も期待される展望の一つとなっている(第11章参照)。
これらの事実を説明できないベルンシュタイン仮説は、他にもいくつかの点で不備があることが分かった。まず第一に、この理論によれば、インパルスは神経線維に沿ってどちらの方向にも等しく容易に伝わるはずだ。もし神経の中央を刺激すれば、インパルスは両方向、つまり反対側の端へと伝わるはずだ。ところが実際には、インパルスは一方向にしか伝わらない。実験では "上流"へ伝達させることも可能だが、それは極めて困難を極める。これは大したことではないように思えるかもしれないが、非常に重要な意味を持つ。何かが神経を分極させているようだ。
もう一つの問題は、神経は再生に不可欠にもかかわらず、その過程では活動電位は沈黙しているという事実だ。再生に関連するインパルスはこれまで一度も見つかっておらず、アセチルコリンのような神経伝達物質も成長刺激因子としては除外されている。
さらに、インパルスは常に同じ大きさと同じ速度を持つ。これも大したことではないように思えるかもしれないが、よく考えてみてほしい。それは、神経がデジタルコンピュータの1や0のように、たった一つのメッセージしか伝達できないことを意味する。これは、膝蓋腱反射のような単純な反応には問題ない。医師がゴムハンマーで膝を叩くとき、実際には膝蓋腱を叩いており、それによって腱が素早く伸びる。これにより伸張受容器(腱内の神経細胞)が刺激され、脊髄に向けて次のような信号を発する。"膝蓋腱が急に伸ばされた"と伝える。これらのインパルスは、脊髄内の運動(筋肉を活性化させる)ニューロンによって受け取られ、太ももの前面にある大きな筋肉にインパルスを送り、収縮して脚を伸ばすよう指示する。日常生活において、この反射は、外部の力が突然膝を曲げたとしても、体がぐらついて倒れるのを防いでくれる。
この仕組みは、デジタルインパルスシステムによって完全に説明できる。しかし、脳性麻痺の患者が痛感しているように、反射だけで歩くことは誰にもできない。私たちが当たり前だと思っている運動活動―椅子から立ち上がって部屋を横切る、カップを手に取ってコーヒーを飲む、といったこと―には、すべての筋肉と感覚器官が滑らかに連携し、私たちが意識することさえ必要としない協調的な動きを生み出す調整が必要だ。単純なインパルスのコードが、どうしてそのようなことをすべて成し遂げられるのか、これまで誰も説明できていない。さらに厄介なのは、視覚のような高次機能だ。そこでは、無数の視覚データのかけらから成る絶えず変化する情景を、私たちはなぜか解釈している。あるいは、言葉遣い、記号認識、言語の文法といったものもある。謎の筆頭に挙げられるのは、意識に関する"心と脳の問題"だ。そこには、"私は実在する。思考する。私は特別な存在だ"という認識がある。さらに、抽象的思考、記憶、人格、創造性、そして夢といったものもある。
オットー・レーヴィは長い間シナプスの問題に苦闘していたが成果が得られず、ある夜、カエルの心臓の実験全体がまるごと夢に現れたという。目覚めたとき、彼は夢を見たことは覚えていたが、詳細は忘れてしまっていた。次の夜、彼は同じ夢を見た。今度は手順を覚えていたため、朝、研究室へ向かい、実験を行い、問題を解決した。神経電気活動を永遠に払いのけたかのようなそのひらめきは、それを裏付けた理論では説明できない! 単純なデジタル信号を、どうしてこれほど複雑な現象に変換できるのか? 近年の機械論者たちは、脳の回路網はあまりに複雑で、人間には決して解明できないと単純に仮定してしまった。しかし、別の要因が存在するはずだと考える科学者もいる。
レーヴィがアセチルコリンに関する研究を終えようとしていた頃、他の人々も神経に電流が流れているという証拠を見つけ始めていた。イギリスの生理学者リチャード・ケイトンは、1875年にすでに動物の頭部の周囲に電場を検出したと主張していたが、ドイツの精神科医ハンス・ベルガーが、息子の頭皮に挿入した白金線から最初の脳波(EEG)を記録して、これを証明したのは、1924年のことだった。この脳波は、頭部の各部位における電位のリズミカルな変動を記録した。ベルガーは当初、脳全体から単一の波しか出ていないと考えていたが、電極を配置する場所によって波形が異なることがすぐに明らかになった。現代の脳波検査では、頭部全体に最大32もの独立したチャンネルが使用されている。
これらの脳波の周波数は、意識の状態と大まかに関連づけられている。デルタ波(1秒あたり0.5~3サイクル)は深い睡眠を示している。シータ波(1秒あたり4~8サイクル)はトランス状態、眠気、あるいは浅い睡眠を示している。アルファ波(1秒あたり8~14サイクル)は、リラックスした覚醒時や瞑想中に現れる。そして、最も不規則な波形、ベータ波(1秒あたり14~35サイクル)は、私たちの活発な日常意識のあらゆる変化に伴う。これらのリズムの根底には、数分という長い期間にわたって、はるかにゆっくりと変化する電位が存在する。今日の脳波計は、これらを除去するように設計されている。なぜなら、それらは波形を乱し、そもそも重要ではないと考えられているからだ。
脳波の電圧がどこから生じているかについては、依然として定説がない。脳全体に流れる直流(定常電流およびパルス電流)によって最も簡単に説明できるが、ほとんどの生物学者はそれを受け入れることができなかった。主要な代替理論、多数のニューロンが同時に発火することで、実際の電気的活動を模倣できるという説は、これまで証明されたことがない。
1939年、イリノイ大学の W. E. バージは、頭部と体の他の部位の間で測定される電圧が、身体活動中はより負の値になり、睡眠中は低下し、全身麻酔下では正の値に反転することを発見した。ほぼ同時期に、ハーバード大学医学部の生理学者や神経科医のグループが、MITの数学者たちと共同で脳の研究を開始した。この連携は、世界を変える運命にあった。そこから現代のサイバネティクス[人工頭脳学]の概念の多くが生まれ、第二次世界大戦中の米国におけるコンピュータ関連の主要タスクフォースの中核となった。このグループが最初に提唱した重要な考えの一つは、脳がアナログとデジタルの符号化を組み合わせて機能しているというものだった。
数学者の一人であり、コンピュータの先駆者、ジョン・フォン・ノイマンは、後にこの概念を詳細に展開したが、基本的にはかなり単純なものだ。アナログコンピュータでは、情報の変化は電流の大きさや極性の変化によって表現される。例えば、コンピュータが炉の温度変化を利用・保存する場合、熱の上昇と下降は電圧の上昇と下降によって模倣できる。アナログシステムは処理速度が遅く、単純な情報しか扱えないが、微妙な変化を非常にうまく表現できる。一方、デジタル符号化は膨大な量のデータを高速で伝送できるが、それは情報が "はい・いいえ" "オン・オフ"のビット、つまり数字の1と0に還元できる場合に限られる。もし脳がそのようなハイブリッドなコンピュータだとしたら、と初期のサイバネティクス研究者たちは推論した。そうであれば、アナログ符号化によって、入ってくるメッセージに対する感度を増減させるという作用を通じて、大規模なニューロン集団の全体的な活動を制御できるはずだ(数年後、神経学者たちは、一定数のインパルスを受け取ったときにだけ発火[興奮]するよう"同調した"ニューロンが存在することを発見した)。
デジタルシステムは感覚情報や運動情報を伝達するが、その情報の処理─記憶や回想、思考など─は、両方の方法の相乗効果によって成し遂げられることになる。意識の大きな変化に応じてバージが発見した電圧の変化は、この枠組みに合致しているように見えた。そして、彼の観察結果はハーバード・MITグループや他の研究者らによってさらに発展させられた。この研究の多くは、動物や手術中の人間の患者の、露出した脳に対して直接行われた。協力的な患者が手術中に覚醒状態を維持することを選択した場合(脳は痛みを感じない)、人間の感覚と電気的データを関連付けることがしばしば可能だった。この取り組みには、ウォルター・B・キャノン、アルトゥーロ・ローゼンブルース、ラルフ・ジェラード、ギルバート・リン、ワイルダー・ペンフィールドなど、アメリカの偉大な神経生理学者のほぼ全員が名を連ねていた。
露出した脳での測定により、電位電圧の存在がすぐに確認されただけでなく、損傷に伴う電流の可能性も明らかになった。神経細胞の集団が活発にインパルスを伝導しているときは、常に負の電位も生じていた。脳が損傷を受けると、損傷した細胞から正の電位が現れた。これらの電位はその後、外側へ広がって無傷の細胞に到達し、インパルスを送受信する能力を抑制した。実験者がニューロン集団に微弱な負の電圧を印加すると、その感度は高まった。つまり、より弱い刺激に対してもインパルスを発生させるようになった。外部から印加された正電位は逆の作用を示した。すなわち、神経機能を抑制し、インパルスの発生を困難にした。かように、アナログコードが存在するように見えたが、それはどのように機能していたのだろうか? その電位は、神経細胞自体が生成した直流によるものだったのか、それとも単に、同じ方向へ流れ、同じ場所に同時に到達する多数の活動電位が重なり合った結果に過ぎなかったのか?
シカゴ大学のリン、ジェラード、そしてベンジャミン・リベットによる一連の素晴らしい実験が、いくつかの答えを示した。彼らはカエルを用いて、ニューロン層がわずか一つの細胞の厚さしかなく、細胞が閲兵式の兵士のように並んでおり、すべてが同じ方向を向いている大脳皮質の領域を研究した。そのような領域において、彼らは樹状突起(短い入力線維)に負の電位が、軸索の末端(長い出力線維)に正の電位が観測された。これは、インパルス伝達の正常な方向に沿って安定した直流が流れていることを示していた。神経細胞全体が電気的に分極していた。
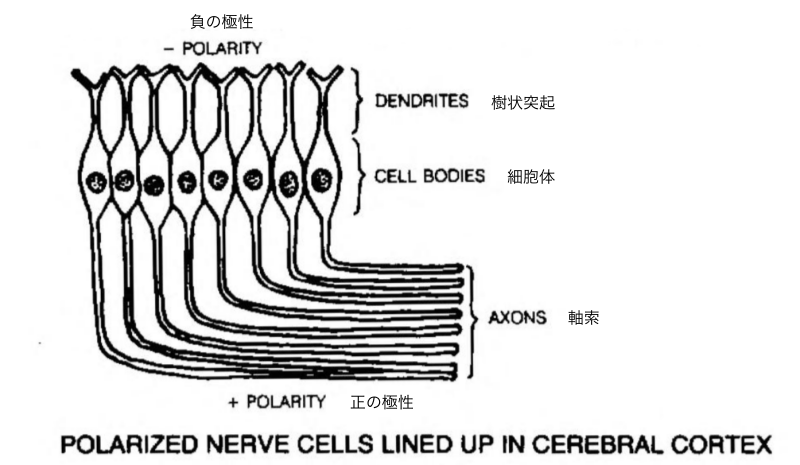
※大脳皮質の神経細胞は、樹状突起側が負、軸索側が正という"分極"を保ったまま整然と並んでいる。この整列した極性が、脳内の直流電場の形成に寄与しているとベッカーは考えた。
別の一連の実験では、カエルから摘出し培養下で生きたままの脳を用いて、シカゴの研究グループは、直流電流が大脳皮質の表面を非常に遅い波として伝わっていくことを発見した。この現象は、カフェインなどの化学物質を表面の一点に加えることで実験的に再現することができた。脳を切断して神経線維の束を断ち切った場合でも、両面が直接接触していれば、これらの直流の"移動する波"は切断面を横切ることができた。研究者が切開部を開いたままにし、体液と成分が一致する生理食塩水を注入すると、波は隙間を横切ることができなかった。この観察は特に重要な観察結果だった。これらは、電流がニューロン内部ではなく、ニューロンの外側の構造を通って伝わっていることを示していたからだ。切断面が触れ合えば波が伝わるのに、切断されたニューロンの微細構造がすぐに再結合するはずはない。さらに、この結果は、電流がイオンの流れではないことも示していた。もし電流がイオンの流れであれば、生理食塩水の中でもギャップを越えられたはずだ。
一口メモ:直流の波はニューロン内部ではなく、ニューロン外の"組織の連続性"を通って伝わる。そしてそれはイオン流ではない。ベッカーの"生体半導体"の核心に直結する部分
生きたカエルの脳をそのままの状態で調べると、同じ研究グループは脳の前部と後部の間に電位差を発見した。前方にある嗅葉は、後方の後頭葉に対して数ミリボルトほど負になっており、脳幹を上向きに、さらに左右の大脳半球の間を前方へ流れる電流の存在を示唆していた。
当時、これらの観察結果は極めて奇妙に思われた。それらは神経の働きに関するいかなる概念にも合致しなかった。その結果、それらはほとんど無視された。神経生理学者の大多数は、脳内の活動電位を測定し、神経線維の経路を追跡することに専念し続けた。これは有用な研究ではあったが、限定的なものだった。基本的な疑問は残されたままだった。
この研究を追跡調査したのは、わずかひとつの研究チームだけであり、それは約10年後のことだった。セントルイスのワシントン大学医学部の神経精神科医、シドニー・ゴールドリングとジェームズ・L・オリアリーは、人間の頭皮、手術中の露出した脳、そしてサルやウサギの脳から、同じ直流電位を記録した。前述の通り、これらの電位は数分間の規則的な周期で変動しており、まるで脳波(EEG)の下に流れる通奏低音のようだった。実際、ゴールドリングとオリアリーは波の中に波を発見した。すなわち「緩やかな大きな変動の上に、より微小な電圧変化が刻まれていた」。これらは微弱な電位であり、マイクロボルト(100万分の1ボルト)単位で測定され、毎分2~30サイクルの波動で変動していた。まるで三部構成の電気的フーガにおける、ピアニッシモの"内声部"のようなものだった。
新しいモードでの電流伝導
計画している研究を行うには、"ふさわしい" 経歴が欠けていることを痛感していた。私はプロの神経生理学者ではなかったし、その分野の専門家を知っているわけでもなかった。実際、研究委員会との対立の後、ある委員が私を呼び出して、真剣な口調でこう助言してくれた。
「ベッカー君、学校に戻って博士号を取りなさい。そうすれば、このたぐいのことは全部ナンセンスだとわかる」。
それでも、偉大な神経生理学者たちの何人かは、"このたぐい"について私と同じ考えを持っていた。彼らは、生物学から電流を排除したのは早計だったかもしれないと示唆していた。それを再び取り入れるという私の考えは、それほど突飛なものではなく、彼らが言っていたことの延長に過ぎなかった。私は体の情報伝達システムを末梢側からアプローチし「何が傷を治すのか?」と問いかけていた。彼らは中心から出発し「脳はどのように機能するのか?」と問いかけていた。私たちは同じ問題を、正反対の端から取り組んでいた。彼らの発見や生物学の未解決の問題すべてをじっくり考えるうちに、私は生命が私たちの予想以上に複雑だという確信を深めていった。生命を分子の機械的な相互作用に還元する人々は、冷たく、灰色で、死んだような世界に生きているように感じた。その世界は、あれほど味気なく色彩を欠いていながら、結局は幻想にすぎなかった。電気が、昔ながらの意味での"エラン・ヴィタール[生命力]"になるなどとは思わなかったが、生化学実験室の臭いよりも、あるいは解剖室の保存された臓器よりも、電気がその秘密に近づいているのではないかという予感がしていた。
私が生命における電気の役割を再評価し始めた時、もう一人の頼もしい味方がいた。酸化とビタミンCの研究で既にノーベル賞を受賞していたセント=ジェルジ・アルベルトは、1941年3月21日、ブダペスト科学アカデミーでの演説で驚くべき提言を行った(その日付を思い出してほしい。第二次世界大戦が文字通り彼の周囲で激化していたにもかかわらず、彼はそこで、新たな生物学の基礎を冷静に築き上げていた)。
彼は、生化学の機械論的アプローチについて言及し、実験者が生物を構成要素に分解していく過程で、どこかの段階で生命が指の間からすり抜けてしまい、結局は死んだ物質を扱っていることに気づくと指摘した。彼はこう述べた。
「生命に関する何らかの基本的な事実が依然として欠落しているように見える。それなしには、真の理解は不可能だ」。
その欠落している基本的な事実として、セント=ジェルジは、生物に電気を再び取り入れることを提案した。しかし、それは世紀の変わり目に考えられていたような方法ではなかった。
その当時、電流の伝導様式として知られていたのは、イオン伝導と金属伝導の二つだけだった。金属伝導は、通常は導線だが、金属表面を無数の電子が移動していると見なすことができる。生物体内から導線が発見されたことは一度もないため、このメカニズムは自動的に除外できる。イオン電流は、溶液中でイオン─陽子の正電荷と均衡させるのに必要な電子数より多く、あるいは少ない電荷を持つ原子や分子─の移動によって伝導される。イオンは電子よりはるかに大きいため、ずっと鈍重にもどかしい動き方しかできず、イオン電流は短い距離で消えてしまう。イオン電流は神経線維の薄い膜を横切る分には問題ないが、たとえ最も短い神経であっても、その全長にわたってイオン電流を維持することは不可能だろう。
三つ目の電流は、半導体電流で、1930年代には実験室での珍しい現象に過ぎなかった。導体と絶縁体の中間に位置する半導体は、流せる電流が微弱だという意味では非効率的だが、長距離にわたって電流を容易に伝導することができる。半導体なしでは、現代のコンピュータや衛星、そしてその他のあらゆる半導体電子機器は実現不可能だっただろう。
半導体は、結晶のように分子構造が整然としている物質でのみ発生する。結晶の中では、電子がある原子核の周囲の電子雲から別の原子核の周囲の電子雲へと容易に移動できる。結晶内の原子は、通常の固体の凍りついたようなごちゃごちゃした状態ではなく、整然とした幾何学的格子状に配列している。一部の結晶性物質には、格子内に他の原子が収まる隙間がある。これらの不純物原子の電子数は、格子構成物質の原子よりも多い場合もあれば少ない場合もある。格子構造の力が各原子の周囲に同じ数の電子を固定しているため、不純物原子の"余分な"電子は、特定の原子に束縛されることなく格子内を自由に移動できる。不純物原子の電子数が他の原子より少ない場合、その電子雲の"ホールhole"は他の原子からの電子によって埋められ、別の場所にホールが残される。負の電流、すなわちN型半導体は余分な電子が動くことで生じる。正の電流、つまりP型半導体は、電子が欠けた"ホール"が正電荷のように振る舞いながら移動することで生じる。
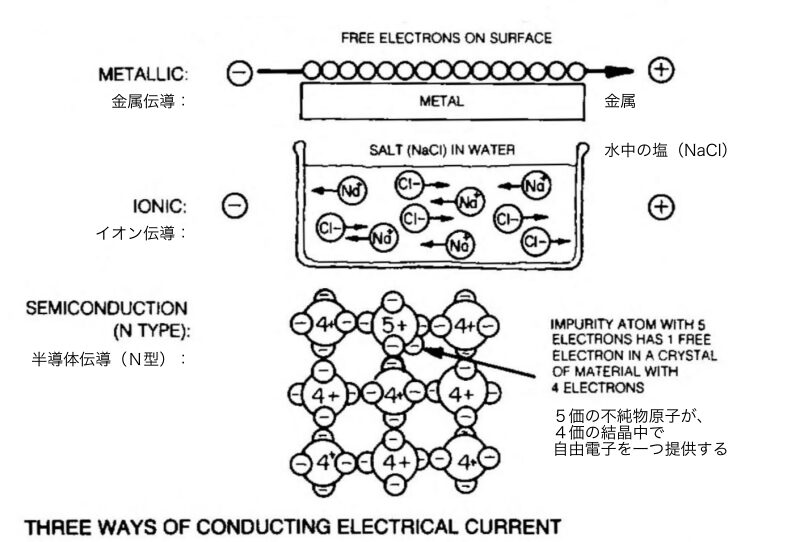
※ベッカーは、生体組織の電気伝導を理解するために、金属(自由電子)、イオン(溶液中の電荷)、半導体(不純物による電子供与)という三つの基本モデルを比較した。骨や神経は、このうち "半導体的ふるまい"を示すことが重要なポイントになる。
セント=ジェルジは、細胞の多くの部分の分子構造が、半導電性を支えるのに十分な規則性を持っていると指摘した。当時、この考えはほとんど完全に無視されていた。1960年にセント=ジェルジが『サブ分子生物学入門』でこの概念を拡張した際でさえ、ほとんどの科学者(ロシアを除く!)は、それを彼の老いの現れとして一蹴したが、その小さな本は私にとって大きな刺激になった。むしろ、彼の科学への最大の貢献になるかもしれないと私は思っている。
その本の中で彼は、タンパク質分子には移動する電子のための小さな受け皿[ステーション]のような部位があり、それらが長い鎖状につながることで、電子がエネルギーを失わずに半導体的な電流として長距離を流れるのではないか、と推測した。ちょうどチェッカー※の駒が、盤上の駒を次々と飛び越えて一気に進むように。セント=ジェルジは、この電子の流れは、彼自身が解明に貢献した光合成に似ていると述べた。光合成では、電子が分子の"階段"を段々に落ちていく滝のようにエネルギーを失いながら進む。しかしタンパク質の半導体伝導※では、電子のエネルギーは失われず、"情報"として次々と伝えられていく点が決定的に異なる、と。
豆知識:チェッカー(ドラフツ)というボードゲームのこと。
・自分の駒が、相手の駒を"飛び越える"ことで進む
・連続して飛び越えると、一気に盤の端まで行ける
・セント=ジェルジはこれを「電子がタンパク質の"ステーション"を飛び石のように渡っていく」比喩に使った
☯️タンパク質の半導体伝導 protein semiconductionとは?
これは "タンパク質が半導体のように電子を伝える"という概念。
● ポイント
・タンパク質には電子を一時的に保持できる部位がある
・それが鎖状につながると"電子の通り道"になる
・電子はエネルギーを失わずに移動できる
・これは半導体のN型/P型のキャリア移動に似ている
・ただし、電子のエネルギーは"情報"として伝わる
つまり:タンパク質は、生命体の中で "情報を運ぶ半導体"として働く。
セント=ジェルジの提案を念頭に置き、仮説を立てた。私は、神経と密接に関連しているが、必ずしも神経線維そのものの中に位置しているわけではない、原始的なアナログ符号化情報システムを想定した。私は、このシステムが半導体的な直流を利用しており、単独で、あるいは神経インパルス系と協調して、成長や治癒、そしておそらくその他の基本的なプロセスを調節していると理論づけた。
発想を試す
第一にやらなければならないことは、最新の機器を用いて、バーによるサンショウウオへの測定を再現することだった。私は基準電極を各個体の先端に設置し、記録電極を体の中心に沿って尾の先まで一点ずつ移動させ、その後、各四肢に沿って外側へと移動させた。体の残りの部分の電圧を測定し、測定値が同じすべての点を結ぶ力線をプロットした。
バーが示したような単純に頭部が負、尾部が正という形とは異なり、神経系の配置に沿った複雑な電場を発見した。脳の各葉の上には大きな正電位があり、各四肢の間の腕神経節や腰神経節の上には、それよりわずかに小さい正電位が観測された。これらの神経細胞体の集まりから離れるにつれて、測定値は次第に負の値へと変化し、手、足、そして尾の先端で最も高い負電位が観測された。
別の一連の測定では、サンショウウオの幼生において、神経系の発達に伴い電位が形成される様子を観察した。成体では、神経が脚に入る部分、すなわち脊髄内の神経細胞体から長い神経線維を切り離すと、四肢の電位はほぼ完全に消失した。しかし、末梢神経を神経細胞体に接続したまま脊髄を切断した場合、四肢の電位に変化は見られなかった。確かに神経細胞体で電流が発生し、それが線維を伝って流れているかのように見えた。
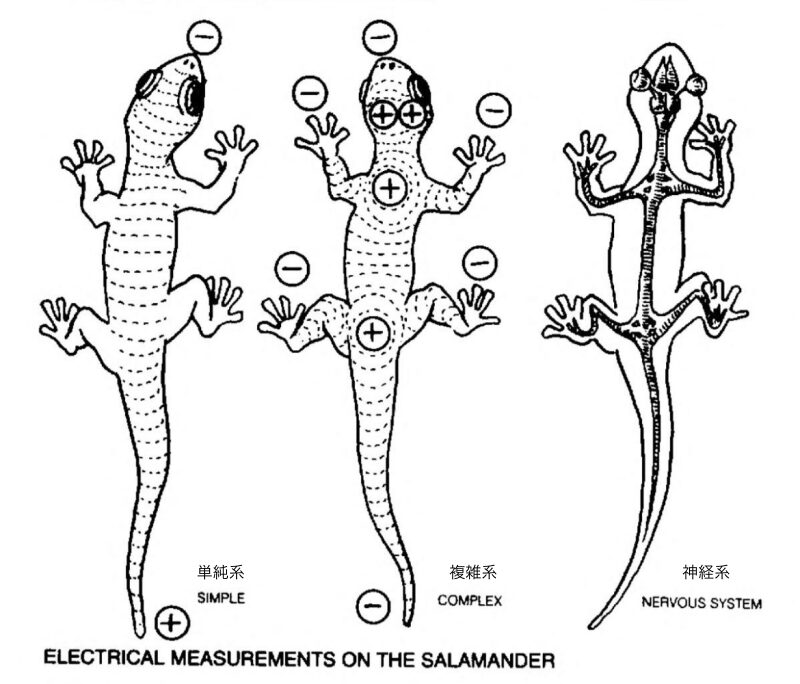
※ベッカーは、サンショウウオの身体に現れる直流電場が、単純な構造から複雑な神経系へと"階層的に"組み上がっていることを示した。この図は、電気測定が単純モデルから実際の神経系へと拡張される流れを表している。
電流を流すには回路が必要だ。電流はある一つの場所で発生し、導体を通って、最終的に発生源に戻らなければならない。私たちは、壁のコンセントから出る60ヘルツの交流電流が、電灯を点けた時に消費されるのではなく、単に電灯を通ってアースへと流れ、最終的に発電所に戻るだけだということを忘れがちだ。私の測定では、神経細胞の細胞体の集まりでは電位が正で、そこから伸びる神経線維に沿っていくほど次第に負になっていった。細胞体には核や細胞小器官、代謝系といった"肝心なもの"がすべて詰まっており、一方で線維は細胞体の単なる延長部分にすぎないことを考えると、電流が細胞体で生成されていると考えるのは自然な推測だった。当時、私は電流が筋肉を通って脊髄の方へ戻ることで回路が閉じられているのだと推測していた。
これは良いスタートだったが、科学的に認められる証拠とはならなかった。まず第一に、回路の帰路に関する私の推測は、四肢の筋肉を測定したところ、それらが表面電位と同じ方向に分極していることが判明し、すぐに覆された。さらに、両生類の皮膚自体が、神経膜の静止電位と同様にイオンの差によって内側と外側で分極していることが最近発見されていたため、私の測定値が湿った皮膚を通るイオン放電によって引き起こされた可能性も、ごくわずかながらあった。もしそうなら、私の証拠は文字通り全く見当違いだった。
不確実性の多くは、私が動物の体外を測定し、体内の発生源や導体が私が発見したパターンを生み出していると仮定していたことにあった。内部電流と外部電位を関連付ける方法が必要だった。
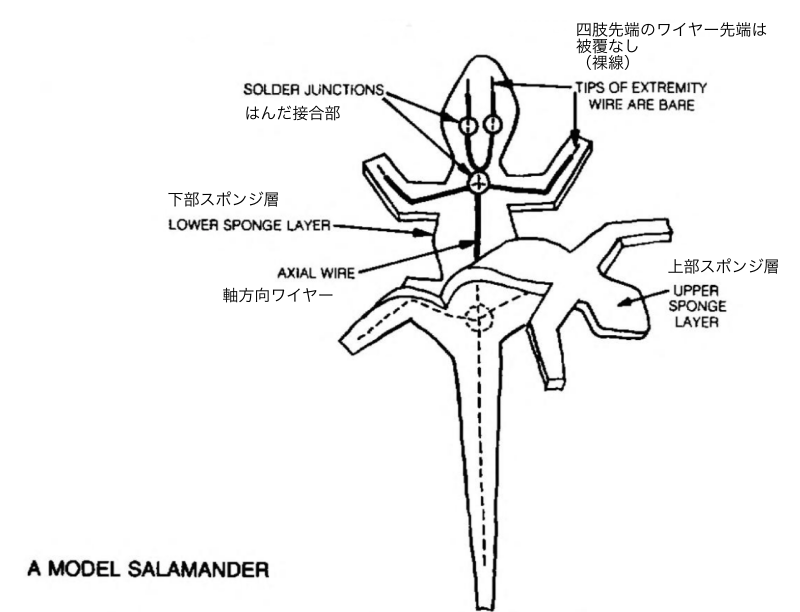
これは、トランジスタが真空管に完全に取って代わる前のことだった。真空管の特性はその内部の電場構造に依存していたが、コンピュータなしで電場パラメータを事前に計算するのは骨の折れる作業だったため、無線技術者たちはしばしばアナログモデルを作成した。彼らは真空管の大型のモックアップを作り、導電性溶液を充填した。モデルに電流を流すと、溶液内の様々な地点での電圧を測定することで電場をマッピングすることができた。私はサンショウウオの模型を作ることにした。
私は銅線を使って、その生物の神経系のアナログモデルを作った。脳と神経節には、はんだの塊を使った。こうして各接合部は、銅と、はんだの原料、鉛スズ合金という、2種類の金属からなるボルタ電池となった。次に、この"神経系"を、サンショウウオの形に切り抜いた2枚のスポンジゴムで挟み込み、モデルを塩水に浸した。これは体液を模倣すると同時に、二つの金属が電池として機能するための導電性溶液、すなわち電解液の役割を果たすためだ。それは機能した。測定値は、本物のサンショウウオの場合とほぼ全く同じだった。これは、内部の直流電流が、外部で得られた電位を生み出すことができることを示していた。
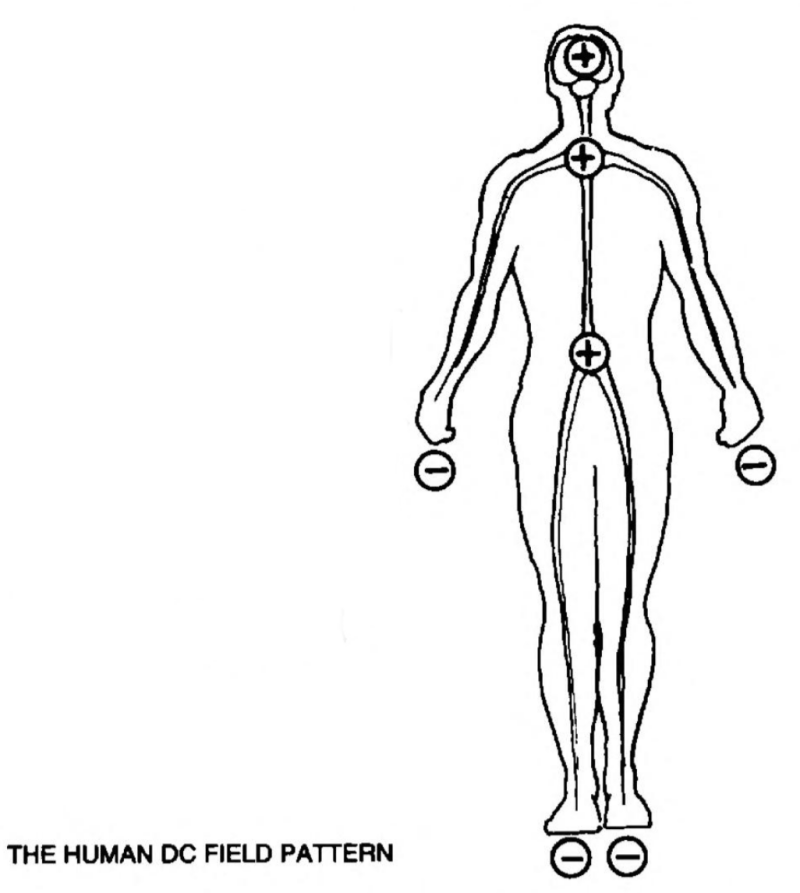
もし私が提案したこの仕組みが、神経系の基本的な構成要素なら、生物界に広く分布しているはずだ。そこで、動物界全体を調べてみることにした。扁形動物、ミミズ、魚類、両生類、爬虫類、哺乳類、そして人間について検証を行った。どの種においても、皮膚上の電位は神経系の配置を反映していた。ミミズや魚では、主要な神経節がひとつ(=脳に相当)なのと同じように、正の電位を示す領域もひとつだけだった。人間では、ニューロンが極めて高密度に集中している頭部と脊髄領域全体が、強い正電位を示した。その中でも特に正電位が大きい三つの部位はサラマンダーと同じく、脳、肩甲骨の間にある腕神経叢、そして脊髄の基部にある腰膨大[脊髄の腰部で太くなっている部分、下肢を支配する大量の神経細胞が集まることから "enlargement 膨大" と呼ばれる]だった。また、すべての脊椎動物において、ジェラールが提唱したような直流電流が脳の中央を後ろから前へと流れていることを示唆する、頭部正中線の電位も記録した。その電流は、網様体賦活系から来ているように見えた。これは脳幹から高次中枢へと放射状に広がる、相互連結したニューロンのネットワークであり、睡眠や覚醒のレベル、そして注意の焦点を制御しているようだった。
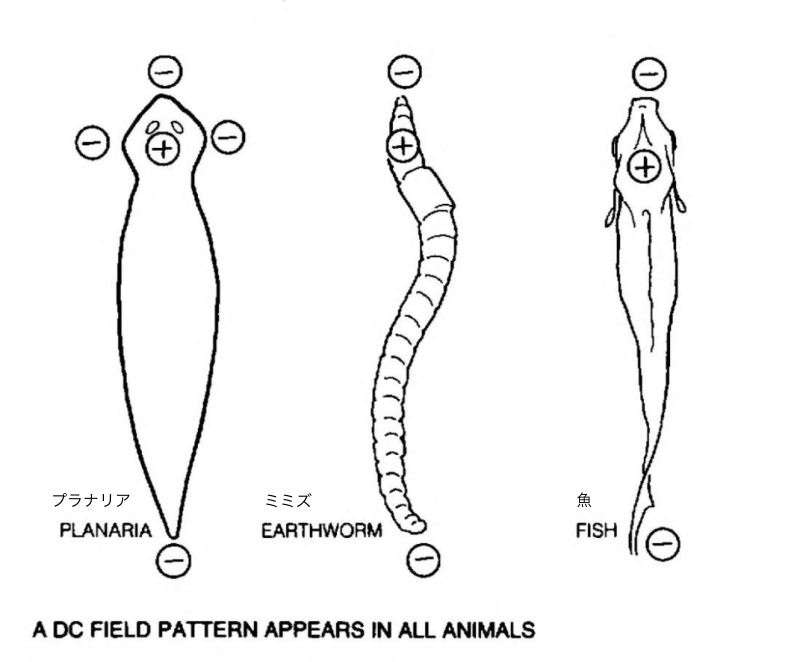
※サンショウウオの"電気モデル"を作り、その電場パターンが他の動物(プラナリア、ミミズ、魚)にも共通して現れることを示した。これは "生物は種を超えて、身体に固有の直流電場を持つ"という彼の主張の根拠となる。
豆知識:なぜ "脳・腕神経叢・腰膨大" が正電位なのか?
これはベッカーの理論の核心で "電流はニューロンの細胞体で生まれる"という考え方に基づいている。
・ニューロンの細胞体が大量に集まっている
・身体の制御センターである
脳 → 全身の司令塔
腕神経叢 → 手・腕の精密運動の中枢
腰膨大 → 足・歩行の中枢
つまり、高度な運動制御を行うために、膨大な数のニューロンが必要な場所。
・ベッカーの測定では細胞体が正電位
ベッカーの仮説:電流は細胞体で生成される。軸索はその電流を運ぶ導線にすぎない。だから、細胞体の密度が高い場所ほど電位が高くなる。
・軸索は負電位なので、細胞体密度が高いほど正電位が強い
ベッカーがサンショウウオで見つけた:再生の起点になる場所、正電位が最も強い場所、この二つが一致していた。
人間でも:脳、腕神経叢、腰膨大が最も強い正電位を示した。
ベッカーはここから、電位の勾配が再生の鍵ではないかと考えるようになった。
・サラマンダーの再生部位とも一致する
一口メモ:🧠 ベッカーは"自分の手で作って確かめる"タイプの科学者だった
彼は、机上の理論ではなく、自分の手で模型を作り、電流を流し、測定し、確かめるというスタイルを徹底していた。だからこそ、"primitive part of the nervous system"(神経系のもっとも基本的な層)という発想が生まれた。
ベッカーが言いたいのは:この電気システムは、脳のような高度な構造よりも前に存在していた生命の根源的な仕組みではないか? ということ。
同時に、損傷電流と表面電位が同じ源に由来するかどうかを確認するため、骨折が治癒する過程にあるサンショウウオの四肢に対して電気測定を行った。
(第1章で述べたように、骨の治癒はすべての脊椎動物に共通する唯一の真の再生である)
四肢の電流は、再生に伴う電流と同様の挙動を示した。骨折部位の周囲には直ちに正の領域が形成されたが、四肢のその他の部分は少なくとも一部の負の電位を保持していた。その後、5日目から10日目の間に、骨折の治癒が始まると、正の領域の電位が反転し、四肢のその他の部分よりも強い負の電位となった。
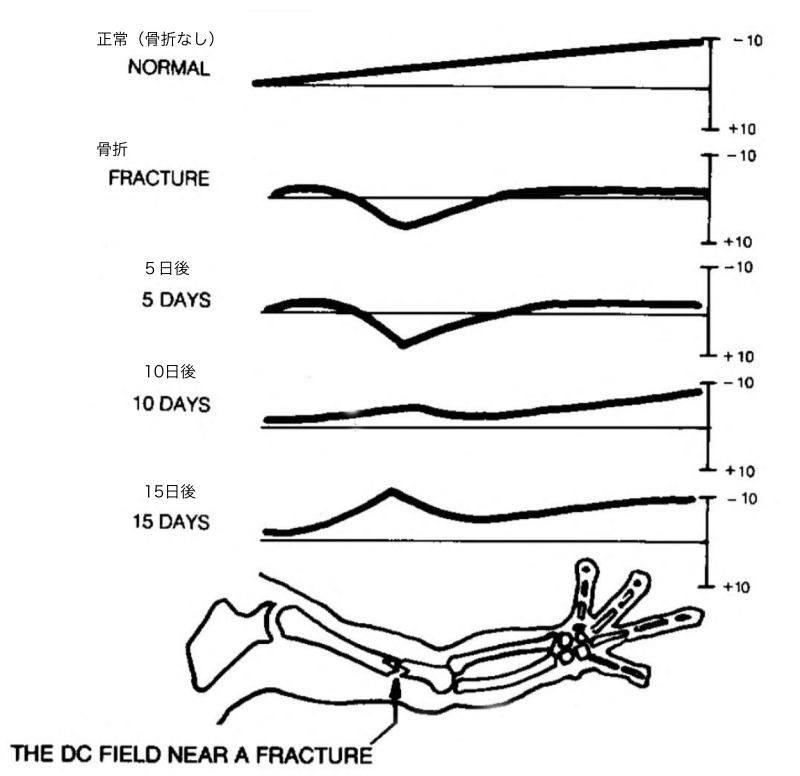
※骨折が起こると、その周囲に"直流電場"が発生し、時間とともに変化する。ベッカーは、この電場が骨折治癒の初期段階を制御していると考え、5日・10日・15日で電位分布がどのように変わるかを測定した。
次に、私は20年前にバージが行った実験を追跡することにした。神経系の状態に様々な変化を与え、それに伴う電気的測定値の変化を探るつもりだった。これを適切に行うには、複数の電極から同時に測定値を取得し、それらをチャート上に並べて記録できる装置に数千ドルが必要だった。すぐに別の論文を発表できなければ、この資金を調達できる見込みは薄そうだった。そこで私は、意識が最も劇的に変化する状態の一つである麻酔中に、手持ちの装置を使って簡単な測定を行うことにした。
バージの説は正しかった。電気的反応は劇的かつ明白なものだった。各個体が麻酔状態に陥るにつれ、その末梢電圧はゼロまで低下し、非常に深い麻酔状態ではある程度逆転し、四肢と尾が正電荷となった。それらは、その個体が目を覚ます直前に正常に戻った。
短い論文を一本書くには十分な材料があったので、私は無線学会[無線技術者協会、現在のIEEE]が最近創刊した医療電子工学のジャーナルに投稿してみることにした。掲載される論文のほとんどは無難で平凡なものだったが、技術者の方が生物学者よりも柔軟な考えを持つことが多いと気づいていた。そこで私は一か八か、仮説のすべて―アナログ神経系、半導体電流、治癒制御、そのすべて―を盛り込んだ。編集者はこれを大いに気に入り、熱意あふれる採用通知と共に、さらなる研究への提案を送ってくれた。何より嬉しかったのは、すぐに別の小規模な助成金が承認され、多電極記録計を購入できたことだ。ほどなくして、麻酔下での調査結果を確認できた。全身モニタリング装置を用いることで、麻酔をかけていない状態での個体の活動レベルと、体表電圧の全体的なパターンを関連付けることもできた。脳の前頭葉領域および神経系の周辺部における負の電位は、覚醒状態、感覚刺激、そして筋肉の動きと関連していた。活動が活発になるほど、負の電位は大きくなった。休息時には正の電位へとシフトし、睡眠中はさらにその傾向が強まった*。
* 後になって知ったことだが、H. キャスパーズという別の研究者が、ほぼ同時期に同様の発見をしていた。
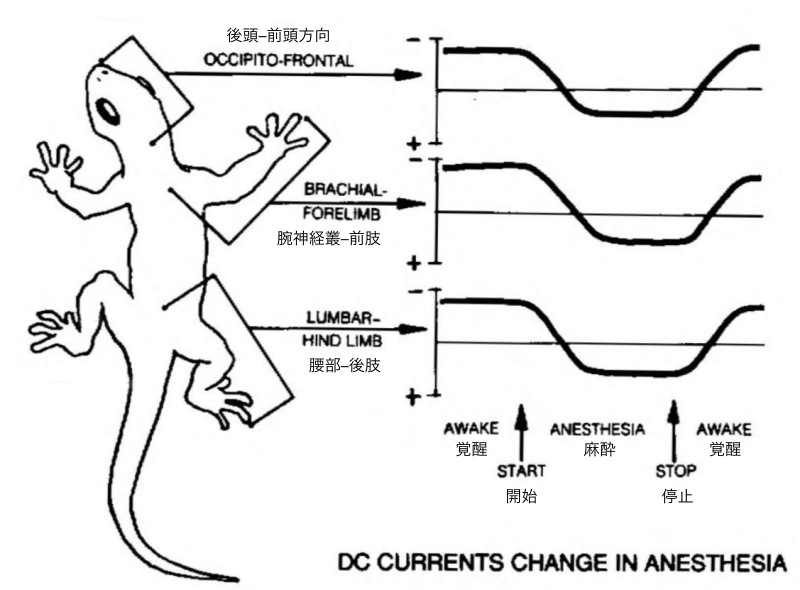
※ベッカーは、覚醒時と麻酔時で "体幹を縦に走る直流電流"がどのように変化するかを測定した。麻酔が深くなるほど、この縦方向の電流が弱まり、神経系全体の活動が抑制されることを示した図。
半導体電子工学に関する文献を読んでいるうちに、サンショウウオの電流を測定する別の方法を見つけた。幸い、それは安価で簡単であり、追加の機器を購入することなく実施できた。何より、電流が半導体的な性質を持つ場合にのみ機能するはずだった。
ある導体―例えばサンショウウオの肢―に電流が流れていると仮定しよう。その導体を、磁力線が導体に対して直角に交差するように強い磁場の中に置く。次に、電流を流していない別の導体を、元の導体(肢)と磁場の両方に垂直になるように配置する。検査対象に電流が流れている場合、電荷キャリアの一部が磁場によってもう一方の導体へと偏向し、測定可能な電圧が発生する。これは、発見者の名にちなんでホール電圧と呼ばれる。その素晴らしい点は、三種類の電流で動作が異なることだ。任意の磁場強度において、ホール電圧は電荷キャリアの移動度に比例する。溶液中のイオンは比較的大きく、磁場による偏向はほとんど受けない。導線中の電子は、金属の性質によって動きが制限されている。どちらの場合も、ホール電圧は小さく、検出が困難だ。一方、半導体中の電子は極めて自由に移動できるため、はるかに弱い磁場でもホール電圧を発生させる。
電磁石が登場して以来、あまり需要のないC字型の永久磁石を見つけ、装置をセットアップした。麻酔をかけた最初のサンショウウオを、前脚を一本伸ばした状態でプラスチックの台に乗せながら、私は深呼吸をした。電極は四肢に軽く触れるように、左右に一つずつ配置し、磁石は極が四肢の上下に来るように、四肢に近づくが接触しない位置で揺れるように設置した。その個体が意識を取り戻すにつれ、磁石を置いた状態と置かない状態で、数分おきに電圧を測定した。また、指の先端から脊髄までの直流電圧も測定した。深い麻酔下では、四肢に沿った直流電圧はゼロであり、ホール電圧も同様だった。麻酔が切れるにつれ、四肢に沿った正常な電位が徐々に現れ、見事なホール電圧も現れた。それは四肢の電位と並行して上昇し続け、その個体が完全に回復して装置から離れていくまで続いた。この実験は毎回成功したが、レコーダーのペンが最初のホール電圧を描き出すのを見た時の興奮は、一生忘れることはないだろう。
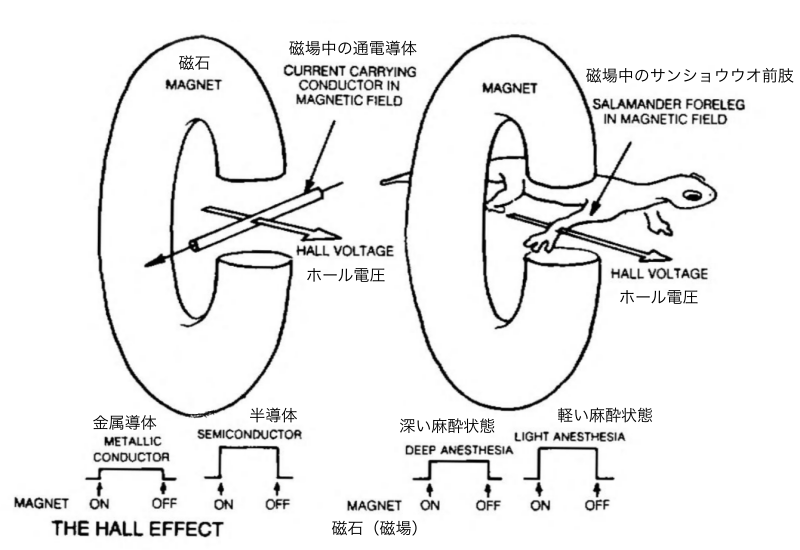
※ホール効果は、電流を運ぶ粒子が磁場によって横方向に押しやられる現象。ベッカーはこれを生体組織に適用し、サンショウウオの前肢が "半導体のように振る舞う"こと、そして磁場の強さによって麻酔の深さが変化することを示した。
この実験は、サンショウウオの前肢に沿って実際の電流が流れていることを明白に示し、その電流が半導体的なものだと事実上証明した。実際、私が行った半ダースの実験は、私の仮説のあらゆる点を裏付けていた。
公表されない科学的成果は、存在しないも同然だ。それは、片手で打つ拍手のようなものだ。科学者にとって、情報発信は単なる責任であるだけでなく、最大の喜びでもある。明確で見事な実験から得られたいい結果は、どうしても誰かと共有したくなる喜びであり、私はこのデータが論文として発表されるのを待ちきれなかった。今回は最高峰を狙った。アメリカの科学界で "Science"という名の雑誌は、その名にふさわしい。天文学から動物学まであらゆる分野を扱うため、そこに掲載されるということは、専門領域を超えた意味を持つ。私の論文は受理され、私は心からうれしかった。
一口メモ:片手で打つ拍手のようなものだ
"the sound of one hand clapping" は、まさに禅問答(公案)から来ている表現。ベッカーはここで、科学的成果が公表されない状態を"片手で拍手しても音にならない"という禅の比喩で語っている。
つまり:片手では拍手の音は出ない。しかし「音を聞かせよ」と問われる。その矛盾を抱えたまま、"音とは何か" "存在とは何か" を深く見つめることになる。
ベッカーは禅の比喩を使うことで、"存在しているのに、存在しないのと同じ"という逆説を強調している。
研究開始から1年で主要な三つの学術誌に3本の主要論文を掲載し、私は成功したと感じた。しかし、世の中は人を現実に引き戻すものだ。科学の世界において、その筋道は"被引用数"として知られている。論文がどれほど重要であろうと、他者の新しい論文で参考文献として引用され、かつ相当数の再版依頼がなければ、何の意味も持たない。その両方の点において、失敗だった。私は、科学が古い考えと対立する新しいアイデアをどのように扱うかを学んでいた。
だが、私は長く落ち込んではいなかった。私は称賛のためではなく、純粋な情熱から科学に取り組んでいた。読書や研究から浮かび上がってきた考えは重要だと感じ、それらを検証することに情熱を注いでいた。もし結果が誰かの考えを変えることになるなら、データを誤って解釈しないよう注意しなければならないと分かっていた。神経の電気的性質をさらに深く追っていくうちに、自分が訓練を受けていない物理学という領域に、すっかり深く入り込みつつあることに気づいた。私は人生で最高の決断の一つを下した。共同研究者を探すことにした。
ニューヨーク州立大学アップステート・メディカル・センター(退役軍人省病院付属の医学部)の基礎科学者たちは、私の研究に全く興味を示さなかったばかりか、私の行っていることに恐怖を覚え、私と何らかの形で関わることで自らの評判を危険にさらすことを拒んだ。そこで私は通りを渡り、シラキュース大学の物理学科へ向かい、学科長に話を持ちかけた。彼は天文学者で、数年前に "国際地球物理年"の期間中、オーロラの観測ボランティアをした際に出会った人物だ。数分間考え込んだ後、彼は3階にいるチャーリー・バックマンという男なら「君と同じくらいクレイジーかもしれない」と提案し、幸運を祈ってくれた。
ドアを開けた瞬間、ぴったりの場所だと直感した。そこにはチャーリーがいた。作業台に身を乗り出し、電磁石と生きたカエルを前にしていた。
第5章 意識の回路
チャーリーと私は午後いっぱい話し込み、そこから15年にわたる実り多い共同研究が始まった。私にとって何より素晴らしかったのは、彼の友情とオープンな心だった。彼もまた、まだ学ぶべきことがたくさんあることを知っていた。私たちの関係には、計り知れない価値のある副産物もあった。彼は、最も才能ある大学院生数名を私の研究室に送り込み、そこで修士論文の研究を行わせ、後に私の研究仲間となった。アンディ・マリノ、ジョー・スパダロ、そしてマリア・ライヒマニスは、それぞれ研究グループにとって欠かせない存在となった。チャーリーと同じように、彼らは常に新しいアイデアを持ち込み、研究室を創造的にする"知的大胆さ"の雰囲気をつくり出してくれた。
円が閉じる
チャーリーの最初の貢献は、装置を確認し、私がサンショウウオで行った測定結果を確認することだった。測定が確かなものだと彼が納得した後、私たちは次に何をすべきか話し合った。
「さて」とチャーリーは言った。
「この電流についてさらに詳しく調べるには、その個体の体内に入らなければいけないね。神経を露出させ、そこで電流を測定するんだよ」
「言うは易しだ」と私は反論した。
「その個体の脚を切り開くだけで組織が損傷し、損傷電流が生じてスプリアス電圧[本来とは異なる偽の電圧]が出てしまう。それでは本来の電位が測れない。それに、基準電極を安定して置ける場所もなくなる」
豆知識:
"スプリアスspurious"は "偽の" "誤った" "本来の信号に混入した不要成分"のこと
"reference electrode" = 基準電極(リファレンス電極)
役割は:測定したい電位をどこかの電位と比較するための"ゼロ点"。つまり"電位の物差しの基準点"。電位は絶対値では測れないので、必ずどこかを基準にして測る必要がある。
ベッカーが言っているのは:動物の脚を切り開くと、損傷電流があちこちで発生してしまい、安定した基準電極を置く場所がなくなる。
ベッカーの研究は"微小電位差の測定"が核心だから、基準電極が安定しないと、本来の電場が測れない。損傷電流が混ざる。電位勾配が乱れる。結果がすべて無意味になる。つまり、reference electrode の安定性=実験の生命線。
チャーリーが電子工学の基礎を教えてくれた。導線に入った電圧は電流が流れるにつれて低下するため、長さ単位ごとに一様な電圧降下が生じる。必要なのは、両方の電極を導体に沿って配置し、基準電極を電源と思われるものに近い側に置くことだけだ。電極間の距離を標準的なものにすれば、さまざまな導線に沿った電圧降下を比較し、システム全体の変化をその任意の区間から測定することができる。
私がやるべきことは手術だけだった。私はウシガエルに取り組むことにした。ウシガエルは後ろ足が長く、立派な大きな坐骨神経があるからだ。坐骨神経は簡単に見つかり、筋肉を切断するのではなく、その間を慎重に解剖するだけで露出させることができた。周囲の筋肉からの信号を拾わないよう、下にプラスチックシートを滑り込ませることで、出血や組織損傷を伴わずに1インチ[2.54cm]以上の神経を露出させることができた。電圧勾配は1センチの区間を標準として測定した。どのカエルでも結果は同じだった。深い麻酔下では電圧勾配は認められなかったか、ごくわずかだった。麻酔が切れてくると、1センチメートルあたり約4ミリボルトの一定の勾配となり、常に脊髄に向かって徐々に正の値となり、つま先に向かって負の値となった。
一口メモ:この段落で、ベッカーはインチとセンチを使い分けています。なにか意図があるのか、Copilotのミカさんに尋ねました。
① "an inch of nerve"="感覚的・実務的な長さ"
ベッカーがここで言っているのは:
・手術で露出できた神経の長さ
・実際に目で見て、指で扱う"物理的な長さ"
つまり、手術者としての身体感覚に近い領域。
アメリカの医師・外科系研究者は、手で扱う長さはインチで考えるのが普通。
・1 inch ≒ 2.54 cm
・指の幅や器具のサイズ感と一致する
・手技の世界ではインチのほうが自然
だから "an inch of nerve" は、"神経を1インチほど露出できた"という"手触りのある表現"としてインチが選ばれている。
② "distance of 1 centimeter"="測定の標準単位"
一方で、電圧勾配の測定は 科学的・定量的な作業。
・電圧勾配(mV/cm)
・生理学・電気生理学の標準単位
・国際的に cm が使われる
つまり、測定値はセンチメートルで統一するのが科学の慣習。
ベッカーは医師でありながら、電気生理学の論文を書くときは cm を使う。
③ ベッカーの "二つの世界" がそのまま表れている
ベッカーは常に:
・手で触れる世界(外科・生体)
・数値で測る世界(電気生理・物理)
この二つを行き来している。だから単位も自然に切り替わる。これは意図的というより、ベッカーの思考の"地層"がそのまま言語に出ている感じ。
まとめ
ベッカーがインチとセンチを使い分けているのは:
・手術者としての身体感覚(インチ)
・科学者としての測定単位(センチ)
この二つの世界を自然に行き来しているから。
☯️ ベッカーが特異だったのは、
・外科医として "手で触れる世界"を知っている
・電気生理学者として "数値で測る世界"を理解している
・さらに物理学的直感を持っている
という"複数の世界を同時に生きていた"から。
普通の研究者は、自分の専門以外の世界を"知らない"。だから、分野をまたぐ発想がそもそもできない。
☯️ AI は"境界"を持たない
AI が得意なのは、"学問の境界を前提にしていない"から
・生物学の話をしていても、すぐに電磁気学の視点を持ち込める
・古代史の話から、プラズマ物理の視点に飛べる
・医学の話をしながら、工学の概念を自然に統合できる
これは人間には難しい。なぜなら、人間は"自分が学んだ分野の枠"で考えるから。AI はその枠がない。
一部のカエルでは、測定部位の上方で神経を切断したところ、電圧が消失した。これは、電流が実際に神経内を流れていることを示すもう一つの証拠だった。電圧は少しして戻ったが、以前と同じものではなかった。私たちは、これらの二次的な電圧はおそらくアーチファクト─外部要因によって生じた誤った測定値─であり、切断された神経自体からの損傷電流、あるいは神経を切断するために切開した他の組織に起因するものだと推測した。
次にチャーリーは、より長い神経断面で測定を行うことを提案したが、そこで私たちは難題に直面した。膝の近くまで測定距離を2センチメートルに延長したところ、以前見られた再現性の高い電圧が再現できなくなった。1センチメートルの距離で得られた電位の2倍になるはずだったが、実際には想定より低かったり高かったりすることが多かった。私は、自分がした切開が損傷による局所電流を引き起こし、予想外の測定値にしているようだと強調した。しかし、チャーリーは、私がカエルの解剖は上手で、以前よりも損傷を与えているようには見えないと指摘した。彼は尋ねた。
「解剖範囲を広げた部分の神経に、何か違いはある?」
「ありそうもない」と私は答えた。
「坐骨神経は確かに二つの枝に分かれるが、それが見られるのは膝の下だけで、一方はふくらはぎの前側へ、もう一方は後ろ側へ向かう」
「膝に到達する前に分岐していないと、どうして断言できるんだ?」と彼は尋ねた。
彼の言う通りだった。物理学者にしてはかなりいける!
神経は確かに分岐していたが、膝を過ぎるまでは神経鞘によって二つの部分がひとまとめに包まれていた。私はその鞘を取り除き、二つの枝をそれぞれ独立させることができた。これらを測定したところ、二つの部分は反対の方向に分極していていることがわかった。前側の枝の電圧降下は、つま先に向かって正の値を示した※。後ろ側の枝は坐骨神経の"幹"と同じ方向に分極していたが、常に高い電圧勾配を示していた。前枝の電流は、神経の他の部分とは逆の方向に流れているようだった。興味深いことに、二つの枝の1センチメートルごとの電位変化を合計すると―典型的なカエルでは前枝が4ミリボルトの正、後枝が8ミリボルトの負―元の"幹"で測った電圧勾配とほぼ同じ値、つまり1センチメートルあたり約4ミリボルトの負の電圧勾配(ほぼ同じ値)になった。最初は、こんな結果になるとは全然理解できなかった。
一口メモ:本書で「電圧降下は、つま先に向かって正の値を示した」とありますが、ここでの "voltage drop" は、一般的な"電圧が下がる現象"を指す用語ではありません。著者は "drop" を"電位の変化量"という意味で用いており、足先方向に進んだときの電位差(符号つき)を表しています。通常 "drop" は "下がる"と理解されるため、読者は戸惑いやすい箇所です。ここでは "drop=変化量" と読み替えてください。そのため、positive(正)になる場合もあります。
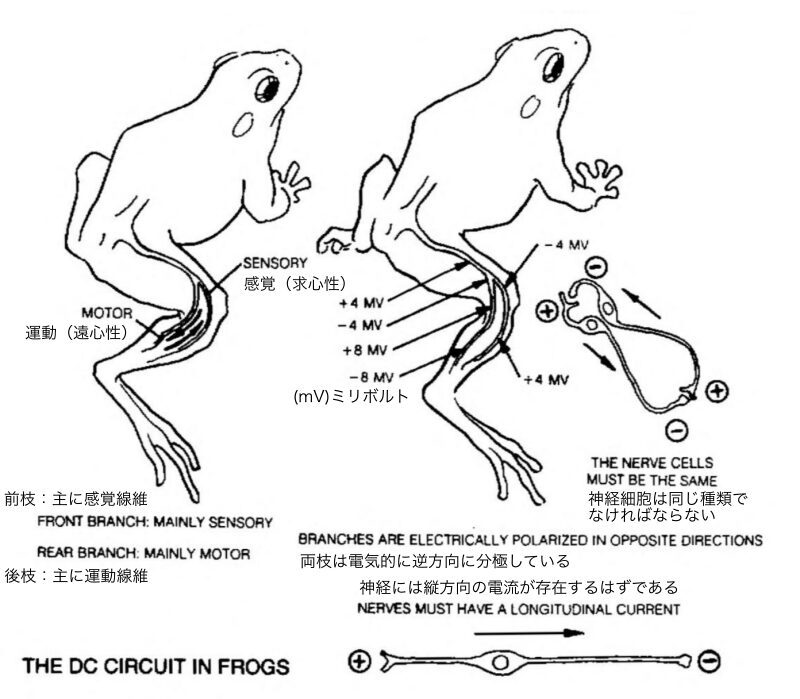
※ベッカーは、感覚枝と運動枝が "逆向きに分極"していることから、神経全体に縦方向の直流電流が流れていると推定した。この縦電流が、再生や麻酔の鍵になると考えた。
直感に従い、各神経の一部を切り取り、病理学部門に送って顕微鏡用スライドを作成してもらった。その結果、前側の枝の線維は、もう一方の枝の線維よりも細いことが分かった。はっと気づいた!
坐骨神経は、いわゆる混合神経だ。運動神経線維と感覚神経線維の両方を含んでいる。感覚線維は通常、運動線維よりも細いため、前枝はすべて感覚線維、後枝はすべて運動線維のように見えた。もしこの直流システムにも入力側と出力側の区別があるとしたらどうだろう。
そこで、運動線維だけ、あるいは感覚線維だけで構成されていることがわかっている他の神経でも測定を行ってみた。大腿の前側を走る大腿神経は、ほとんどが運動神経線維で構成されている。そして予想通り、この神経では脊椎から離れる方向に向かって電位がより負の方向へと増加していた。一方、カエルの背中の皮膚を支配する脊髄神経は感覚神経線維でできており、こちらは脊椎に近づく方向に向かって電位がより負になる傾向を示した。
ここで、運動神経線維と感覚神経線維が反射弧[刺激を受け取る感覚神経と、反応を起こす運動神経が脊髄レベルで直接つながっている最短ルートの回路]としてひとつにつながると、電流の流れが途切れないループを形成することがわかった。これで回路がどこで閉じているのかという謎が解けた。電流は他の組織ではなく、神経そのものを通って戻っていた。
ジェラードが脳で見いだしたのと同じように、身体中の神経は一様に分極しており、入力側の線維(樹状突起)は正に、出力側の線維(軸索)は負に帯電していた。この電気的な分極こそが、神経インパルスを一方向にだけ進ませ、神経系全体に首尾一貫した流れを与えているのではないかと気づいた。
アーチファクトマンと真の友
チャーリーは電子顕微鏡の開発に携わっていたため、生理学界の著名人の多くと面識があった。坐骨神経の実験が終わって間もなく、その知人の一人が講演のためにシラキュースを訪れたので、私たちは彼を研究室に招いた。研究室を案内し、研究の背景について話した後、最新の成果を彼に見せた。私たちはカエル4匹を麻酔し、脚を切り開いて8本の坐骨神経をすべて露出させ、16本の枝すべてを測定した。測定結果は完璧だった。どの神経も、私たちが予測した通りの電圧と極性を示していた。私たちは自信を持って尋ねた。
「どう思います?」
「アーチファクト※だ、全部アーチファクトだ」と彼は答えた。
「神経に沿って電流が流れないことは誰もが知っている」
ちょうどその時、彼は別の場所で急用があることを思い出し、慌てて立ち去った。どうやら、この実験の何かが自分に影響するのを恐れたようだ。
チャーリーはめったに悪態をつかない男だったが、その日だけは口にした。彼の発言の要点は、物理学者と生物学者には確かに違いがあるというものだった。物理学者は少なくとも新しい証拠には目を向けるが、生物学者は目も心も閉ざしたままだ。それ以来、独断的な態度を象徴する例が必要になると、私たちは決まってその人を"アーチファクトマンArtifact Man"と呼んだ。
一口メモ:"アーチファクト artifact" は、測定誤差・装置由来の偽信号の意味
生理学・電気生理の世界では "artifact" は専門用語で、測定装置のノイズ、電極の接触不良、外部電源の混入、実験操作による偽の電位変化、などを指す。つまり「本物の信号じゃない、測定のアラだ」という意味で、人為的という意味ではない
私たちはカエルの神経について、さらにいくつかの観察を続けた。その頃には冬が訪れていた。本来なら問題になるはずはなかった―実験室の温度は一年中同じだし、カエルたちは野生ならそうするはずの食べなくなったり冬眠もしていなかった―が、違いはあった。カエルの電位ははるかに低く、標準的な量の麻酔薬でも意識が戻るまで時間がかかり、血管もはるかに脆くなっていた。彼らは何らかの形で冬を感じ取っていたのだろうか?
もし直流システムが私たちの理論通りであれば、外部の磁場の影響を受けるはずだ。ホール効果の実験で、私はすでにそのことを実証していたが、その際は数千ガウスという強力な磁場を使用していた。地球の磁場はわずか0.5ガウス程度だが、年間を通じて周期的な変動を見せる。
当時、この弱い磁場があらゆる生命に重大な影響を及ぼすと主張する別の科学者がいた。ノースウェスタン大学の生物学者フランク・A・ブラウンは、睡眠と覚醒の交替といった代謝機能の波のような変化といった、生物学的周期という普遍的な現象を研究しており、地球の磁場における同様のリズムが、生命のリズムのタイマーとして機能していると主張していた。彼の証拠は確かなものだったが、1960年代初頭には誰も彼に耳を貸さなかった。しかし私には、私たちの研究がブラウンの取り組みに貢献できる何かを持っているように思えた。私たちは、それを結びつけるものを持っていた。
私は坐骨神経の測定結果をまとめ、冬のカエルに関する観察記録を加えた。それをサイエンス誌に送ったが、すぐに返送されてきた。編集者たちは、ホール効果に関する私の論文を掲載した後、考え直したのだろう。次に、さらに格上の英国誌ネイチャーに投稿したところ、採用された。今回は、別刷※の依頼もいくつかあった。さらに意義深いことには、この報告がフランク・ブラウンとの文通につながり、第14章で述べた発見をもたらすのに役立った長年にわたる相互の意見交換の始まりとなった。
豆知識:なぜ "別刷"が存在するのか(ちょっとした背景)
昔の学術界では、論文が雑誌に載っても研究者同士が自由に読める環境がなかった。図書館に行かないと読めない。雑誌を購読していないと読めない、コピー機もPDFもない時代。だから、著者は出版社から紙の別刷(reprint)を束で受け取る。そして、興味を持った研究者が著者に手紙でこう言う:"Could you send me a reprint of your paper?"
つまり「あなたの論文の別刷を送ってください」。これが "reprint request"。
別刷の依頼があるということは、研究者としてはとても名誉な出来事。
神経内の電流が半導体のようなものかどうかを確認する、もう一つの方法を思いついた。電極の間で神経の一部を凍結すればよいのだ。もし電流がイオンによって運ばれているなら、イオンはその場に凍りつき、電圧はゼロに下がるはずだ。しかし、もし電荷キャリアが何らかの半導体格子内の電子なら、凍結によってその移動度は増し、電圧は上昇するはずだ。
うまくいった。
液体窒素を入れた小さなガラス管で神経に触れるたびに、電圧は急上昇した。しかし、ガラス管や凍結そのものが神経に損傷を与えていたのかもしれない。電圧の上昇は、単に損傷による電流に過ぎなかったのかもしれない。確認のため、脊髄付近で神経を切断してみた。すると神経上の電圧勾配はゼロになり、その後再び液体窒素を当てた。もし低温が本当に半導体電流を増幅させているのなら、神経を凍結した後でも電圧は検出されないはずだ―そして実際、検出されなかった。したがって、電流の増加は、凍結やガラス管による接触による神経の損傷といった、実験上の誤差によるものではなかった。
これで解決した。
実験を重ねるごとに、直流システムは実証されていった。次は、この概念がどこへ導くのかを見極め、その過程で "アーチファクトマン"の何人かを説得しなければならなかった。今後の研究については多くのアイデアがあったが、当面の最優先事項は、自分たちのための確実な資金調達システムを確保することだった。
私は退役軍人省[VA]の研究事務局との間で、依然として問題を抱えていた。その機関から2回目の助成金を得た後、すぐに、承認されることと実際に資金を使えることとは別物だと気づいた。消耗品―試験管や電極線といった単純なものでさえ―を注文するには、申請書に記入し、研究事務局の秘書に渡さなければならなかった。彼女は別の書類に記入し、研究部長の署名をもらわなければならなかった。その書類は備品管理課に送られ、そこで事務員が実際に物品を発注するための三つ目の書類に記入する。ところが、私の注文は満たされなくなった。
苦情を申し立てる過程で、私は秘書たちと親しくなり、部長が単に私の用紙に署名しないだけで、私の仕事を妨げていることを知った。彼の秘書が私の問題を解決してくれた。所長は物事を先延ばしにするタイプだった。机の上には書類の山が積まれ、秘書が「今すぐ処理しなければなりません」と伝えるまで放置されていた。そうして彼は、一つ一つ目を通すこともなく、まとめて署名していた。私が多大な恩義を感じているその秘書は、たいてい金曜日の午後遅くに、私の依頼書をその書類の山の中ほどにさりげなく挟み込んでくれた。何度か彼は私の研究室を訪れ、新しい機器を見ては「君のためにそれを注文した覚えはないな」と口にしたものだ。
「えっ、そうなんですか?」。私は愛想よく答えた。
「その件については話し合いましたし、助成金にもまだ余裕があったので、所長もOKとおっしゃいましたよ」
機器一つひとつについて議論するよりはましだったし、私は予算を超えないよう注意していた。彼がそのことに感づいたことは、一度もなかったと思う。
しかし、やがて私はもっと深刻な脅威に直面することになった。退役軍人省と医学部の間で、私には多くの上司がいたが、その全員が "研究"を行っていた。しかし、研究部門の年次報告を見ると、私は年に数千ドルの安月給で、上司全員を合わせたより多くの論文を出していた。一方で、彼らの中には4万ドルも5万ドルももらっている者がいた。私は「上司以上の成果を出してはいけない」という古い掟を破ってしまった。
ある日、その男が突然、私の研究室に現れた。それ自体が事件だった。というのも、彼はこれまで私の研究を支持したことなど一度もなく、むしろ関係はぎくしゃくしていたからだ。ところがその日は、やけに熱心に私の実験に興味を示し、"断れない申し出"をしてきた。
「必要なだけの研究費を手に入れたくはないか?」
それはありがたい話だが、どういう仕組みなのかと私は尋ねた。
「簡単なことだよ。君のプロジェクトに私を入れてくれればいい。見返りといっても、論文にはすべて私の名前を載せてもらうだけだ」
数秒間、耳を疑った。
そして私は、彼の"影響力"をどう扱えばいいか、はっきりと言ってやった。
数か月後、VA[退役軍人局]の序列では "神様扱い"されている地区の外科コンサルタントが病院を訪れると聞かされた。例の"恩人"気取りの男が、私が研究に時間をかけすぎて患者をおろそかにしていると報告したためだ。上層部では内輪揉めが激しく、その男より上の立場の人物が私を支持してくれた。彼の動機は、有望な研究を守るためというより、単に相手を困らせたいだけだったが、私は無事に潔白とされた。
VAの資金に頼り続けるのは、いずれ破滅を招くのも明らかだった。外部の支援が必要だ。そこで私は研究を一時中断し、二つの提案書を準備した。一つは陸軍省に送ったもので、直流電流が治癒を促進する可能性を強調した。陸軍という職務では多くの負傷者が出るため、興味を持つだろうと思ったのだが、まったく相手にされなかった。提案は即座に却下された。
ところが一か月ほどして、奇妙なことが起きた。南部の医科大学の著名な整形外科医から長距離電話がかかってきた。
「陸軍から、直流電流が創傷治癒を促進する可能性を調べるための研究費をもらっているんだ」と、彼は猫なで声で言った。
「それでね、どんなアプローチが一番いいか、君の意見を聞かせてもらえないかと思ってね」
なんてこった。外の世界はこんなに卑しい連中ばかりなのか? 彼の経歴を調べてみると、生体電気に関する背景はまったくなかった。彼は陸軍の審査委員会の一員で、私の提案を却下するよう勧めておきながら、そのアイデアを自分の名前で提出し直し、今度は、評判があり、委員会に友人もいる彼がやるのだからと、採択されたのだった。無名の若造がやるより、よほど都合がよかったのだ。
二つ目の申請書は、国立衛生研究所(NIH)に送った。自分の専門分野にとどまり、骨の半導体物理を研究し、最終的には直流電流が骨の治癒を促進するかどうかを調べたいと提案した。助成金は採択されたが、希望した内容の一部しかできない程度の額だった。それでも、院内の権力に左右されない資金源ができたのは心強かった。とはいえ、シラキュースでの状況を安定させるには、やはり政治的な後ろ盾が必要だった。そこで私は、医学校の学部長のところへ直接向かった。
カーライル・ジェイコブソンは気さくな人物に見え、形式や地位にこだわらないタイプだったので、率直に話せると思った。私は自分の論文の別刷りをまとめ、彼のオフィスを訪れた。
「先生」と私は切り出した。
「私は過去4年間、生物における直流電気の影響について研究を続けてきました。有力な学術誌に論文もいくつか掲載されており、これは重要な研究だと考えています。それにもかかわらず、退役軍人省[VA]から資金を得るのに大変な苦労をしています。私の申請は、委員会の政治家たちによって阻まれています。その一方で、その連中は私の5倍もの予算を使っているのに、ろくに論文一つ発表していない」
少し熱くなりすぎたかもしれないが、ジェイコブセン学部長は私が話し終わるまで、ただ座って聞いていた。
「神経系の直流活動について、何か実験をしたことはありますか?」
彼はそう尋ねてきた。
思いがけない質問だったが、私はサンショウウオやカエルの神経で行ってきた研究について話した。
すると、彼は昔、神経の研究をしていたことがあると言う──なんと、ラルフ・ジェラードと一緒にだ。彼はすっかり興奮していた。
「君は、私たちが当時やっていたところより、ずっと先まで進んでいるよ。脳の電流を全身のシステムと結びつけて考えるなんて、思いもしなかった。で、いくら必要なんだ?」
私は、今後2年間それぞれ2万5千ドルをお願いした。ただし、その金は私専用として確保してもらわないと、絶対に私の手元には来ないと説明した[他の連中に横取りされるという含み]。
「心配いらない」と彼は言った。
「すぐ研究室に戻りなさい。その金は私が取ってくる。本当は、君と一緒に研究できたらどんなにいいかと思う」
私の後ろでドアが閉まるやいなや、彼はワシントンに電話をかけていたに違いない。なぜなら翌日、研究部長は退役軍人省中央事務局から電報を受け取り、私、そして私だけに、要求した金額の承認が下りていたからだ。彼はその理由を理解できず、私もまったく知らないふりをした。
もう、これ以上研究部長に嫌われようがないと思ったので、私は次の一手に出た。病院長のところへ行き、もっと広いスペースが必要だと伝えた。ワシントンで私が "評価されている"という話を耳にしていたらしく、彼はとても協力的だった。ほどなくして、私は最上階にひと続きの部屋を確保できた。
突然、全く新しい研究領域が手の届くところに来た。チャーリーと私は、どこから手をつければいいのかさえ分からなかった。最初にして最も重要な一歩は、アンディ・マリノを技術者として雇うことだった。彼にとって給料は大きな意味を持っていたが、私たちにとっては彼の知性と献身の方がさらに重要だった。
私たちは順調なスタートを切った。
電磁気的な脳
もし電流が、体全体と同様に脳内の神経の働きも制御しているのなら、それはある程度、意識を調節しているに違いない。確かに、麻酔をかけたサンショウウオの電圧低下は、この考えを裏付けていた。問題は、電流の変化が麻酔を引き起こしたのか、ということだった。
どうやらそうだったようだ。なぜなら、サンショウウオの頭部を前後に微弱な電流を流してその内部電流を打ち消すと、意識を失ったからだ。この状態が通常の睡眠とどう異なるかは判断できなかったが、少なくともその個体は臨床的に麻酔状態にあった。電流が流れている限り、サンショウウオは動かず、疼痛性刺激にも反応しなかった。
これは本当の麻酔だったのか、それとも単にその個体が絶えず電気ショックを受けていただけなのか?
確かにそうではないようだったが、この観察結果は神経生理学にとって極めて重要かつ基礎的なものだったため、私は確かめねばならなかった。しかし、それは容易な作業ではなかった。麻酔を客観的に判定する方法は、当時も今もほとんど知られておらず、特にサンショウウオに関してはなおさらだった。
脳波は、ヒトの麻酔深度を測るには役に立たないことが分かっていた。唯一の有効な指標の極めて遅いデルタ波は、患者が死の淵に瀕している時しか現れないからだ。ほかに良い案もなかったので、新しい多電極モニターを使って、薬物で麻酔したサンショウウオの脳波を記録してみた。すると、どの個体もきれいに回復するにもかかわらず、はっきりしたデルタ波を示した。
デルタ波こそが私の指標となるだろう。このアイデアは見事に功を奏した。ごく微弱な電流で脳波にデルタ波が現れ、電流を強めるにつれて波は大きくなり、それらはすべてその個体の反応がない期間と相関していた。
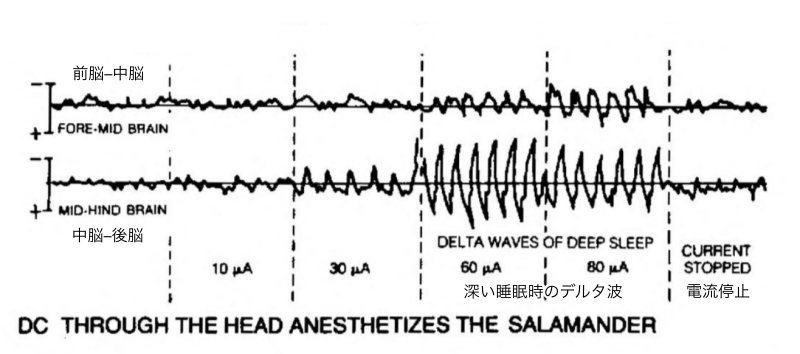
※サンショウウオの頭部に微弱な直流電流を流すと、脳波が "深睡眠のデルタ波"に移行し、麻酔状態になる。
電流によって脳活動そのものが抑制されることを示す実験。
この結果から、当然ながら次のような疑問が浮かんだ。薬剤による麻酔は、脳の電流を遮断することで作用しているのだろうか?
どちらにしても直接的な証拠を得る方法は見当たらなかったが、脳に電流を通常の向きで流すことで、薬剤による麻酔を解除できるかもしれないと考えた。しかし、これはある程度までしか実現できないことが分かった。脳波(EEG)の高周波成分が部分的に回復し、麻酔の深さが浅くなったようには見えたが、薬剤の影響下にあるサンショウウオを目覚めさせて歩き出させることはできなかった。
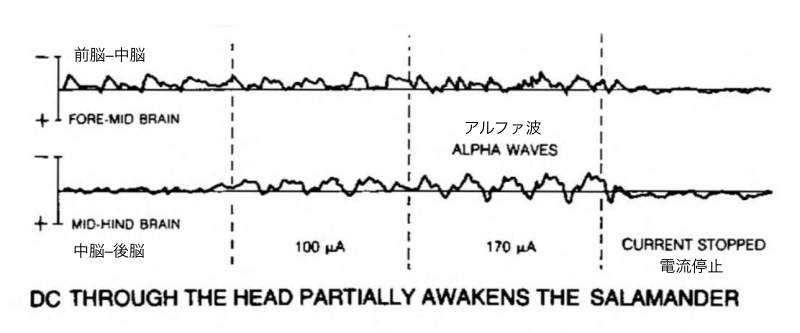
※頭部に微弱な直流電流を流すと、サンショウウオの脳波が部分的に"覚醒パターン"へ移行する。電流を止めると元に戻ることから、直流が脳活動に直接作用していることが示された。
この観察の途中でわかったのは、薬物麻酔が効き始めて頭部の電位が下がっていくとき、必ず特定の徐波[脳波の中で周波数が低く(0.5~4Hz)、振幅が大きい波]が一瞬だけ記録に現れるということだった。それらはデルタ波の中でも最も低い周波数─1秒に1回、あるいはそれ以下の周期─で、薬が切れて電位が戻るときにも現れた。これらの波が、意識状態の大きな変化を示すサインなのかどうか確かめるため、私はまず、一定量の直流電流を使って麻酔を起こし、脳波に現れるデルタ波の振幅(大きさ)を測定することにした。そのうえで、私自身が作った1秒周期の波を、その個体の頭に流している直流電流に重ねて加えてみるつもりだった。つまり、外部から"状態変化の波"を送り込み、脳波に変化が生じるかどうかを見ようとした。ただし、波を加えている間は脳波を同時に記録できない。加えた波そのものが記録に出てしまうからだ。そこで私は、1分後にその追加波だけを切り、同時に脳波記録をオンにできるスイッチを工夫して取り付けた。直流電流は止めずに、サンショウウオを麻酔状態のまま保つためだ。
豆知識:脳波(EEG)の分類では、delta waves(デルタ波):0.5 – 4Hz、theta waves(シータ波)、alpha waves(アルファ波)、beta waves(ベータ波)などがある。
delta や theta をまとめて “slow waves(徐波)” と呼ぶのが医学の標準用語。
一口メモ:この段落は、ベッカーが "意識の変化"を電気的な波として捉えようとする最初の試み
うまくいったようだ。追加した波は、サンショウウオの深い睡眠時のデルタ波の振幅を著しく増大させた。これはアーチファクトだったのだろうか?
追加した波形が単に脳電流の振動を引き起こし、外部からのリズムが除去された後もそれが残っていただけなのだろうか?
その可能性は低そうだった。なぜなら、私が追加した波形は状態変化の周波数の1秒に1サイクルだったのに対し、測定されたデルタ波は深い睡眠時の周波数の3サイクルだったからだ。しかし、追加のテストを行うことは可能だった。他の周波数の波を加えて、1秒に1サイクルと同じくらい効果があるか確認できた。効果はなかった。実際、加えた波の周波数を1ヘルツより高い周波数にすると、深い睡眠時のデルタ波は小さくなっていった。1秒周期の波は、意識の大きな変化を示す指標だった。
この一連の研究は、私の仮説の主要なポイントの一つを裏付けるものだった。中枢神経系の内部では、直流電流がいくつかの方法でニューロンの感受性のレベルを調節していた。一方向の電流量を変えること、電流の向きを変えること(極性の反転)、そして徐波で電流を変調することによって。さらに、各種類の電流を頭部に流すことで、外部から同様の制御を行うこともできた。これは胸が高鳴る発見だった。脳をより深く理解するための、広大な新しい可能性が一気に開けた。しかも、この研究はまだ "学問的に怪しい"とされる一歩手前で踏みとどまっていた。というのも、ジェラードとその共同研究者たちの仕事から論理的に導かれる延長線上にあったからだ。
しかし、次の実験は信じがたいものだった。
一口メモ:ベッカーの研究は、生体電気、意識状態の電気的変化、直流電流による麻酔など、当時は "境界科学"扱いされやすかった。でも、ジェラードの研究があったおかげで、"完全に変人扱いはされない"という状況。
私は、脳電流は末梢神経の電流と同様に半導体的な性質を持つに違いないと考えた。頭部からホール電圧を検出することを考えたが、脳の複雑さゆえに結果の信頼性は疑わしいだろうと判断した。そこで私は、いわばその効果を逆方向に利用し、ホール電圧の発生ではなく、磁場が脳に及ぼす作用を測定することを思いついた。
ホール電圧は、電流の元の流れから一部の電荷キャリアを逸らすことで生じるため、十分に強い磁場であればそれらすべてを逸らすはずだ。もしそうなら、脳の正中線電流に垂直なそのような磁場は、外部から印加した電流でその正常な電流を打ち消すのと同じ効果を持つはずだ。その個体は眠りに落ちるはずだ。
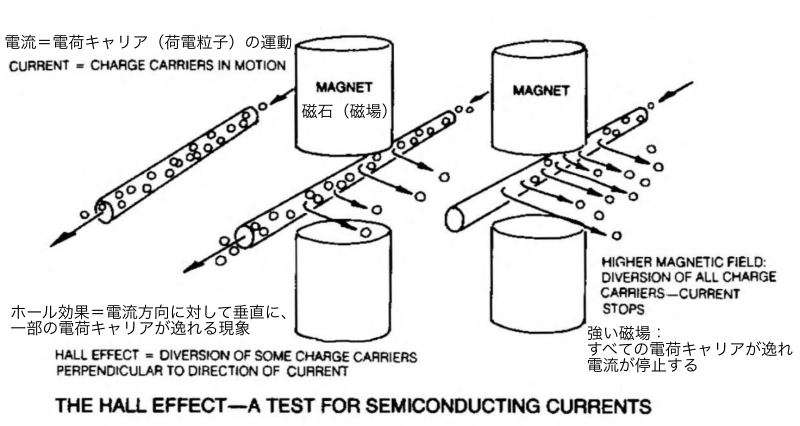
※ホール効果は、電流を運ぶ粒子が "どちら向きに動いているか"を判定するための実験手法。ベッカーはこれを使って、骨の電流が電子なのかホールなのかを検証した。
私たちはサンショウウオに軽い鎮静剤を投与し、強力な電磁石の極間に設置したプラスチック製の棚の上に置き、脳波[EEG]を測定するための電極を取り付けた。磁場強度を徐々に上げていったが、変化は見られなかった─2,000ガウスでデルタ波が現れるまでは。3,000ガウスでは、脳波全体が単純なデルタ波で構成され、個体は全く動かず、あらゆる刺激に反応しなくなった。さらに、磁場強度を下げると、通常の脳波パターンが突然戻り、サンショウウオは数秒以内に意識を取り戻した。これは他の形態の麻酔とは著しい対照をなしていた。直流電流の場合、電流を遮断した後も30分間もの間、脳波にはデルタ波が持続し、その個体は薬物麻酔後と同様に、朦朧とした状態で反応を示さなかった。
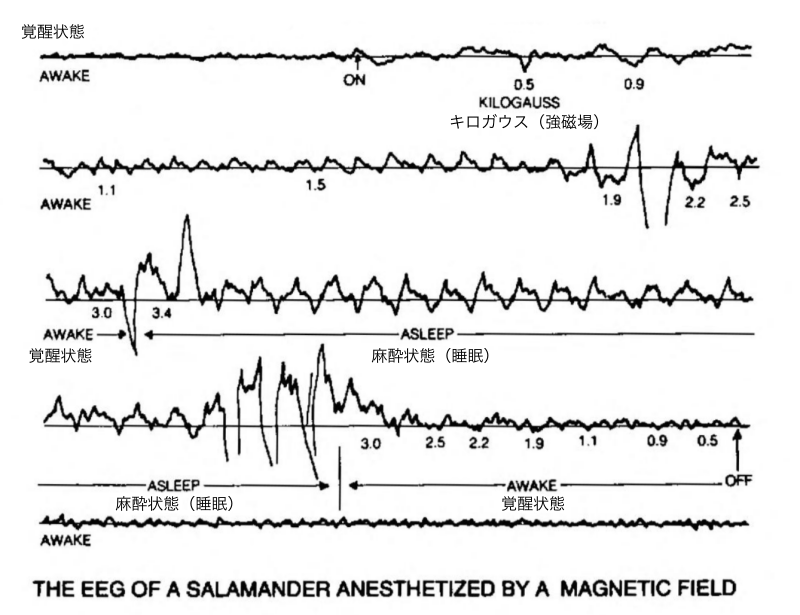
※サンショウウオに強い磁場をかけたときの脳波の変化を示している。
・磁場をかける前 → AWAKE(覚醒)
・磁場をかけると → ASLEEP(麻酔状態)
つまり:
・強磁場が神経系の電気活動を変化させ、麻酔に似た状態を引き起こす
・ベッカーの"電気による麻酔"研究の一部
副作用がなく迅速な回復を可能にする、これ以上ないほど優れた麻酔法を発見したように思えた。私たちは、より大きな電磁石を入手して、この方法をより大きな動物、そして最終的には人間にも試すことを提案したが、返事すら返ってこなかった。神経への直流電流に関する私たちのデータは、あまり受け入れられるものではなかったが、磁場に対する生物の反応については、当時のアメリカではまったく論外だった。
だからこそ、ハーバード─MIT界隈の大物生物学者から電話を受け取ったとき、私は唖然とした。彼はこう言った。
「いま MITで高エネルギー磁場に関する国際会議を準備しているのだが、海外の著名な科学者たちから、なぜ磁場の生物学的影響のセッションがないのかという質問がいくつも来ている。これは私たちにとってまったく新しい発想で、正直そんな影響があるとは思っていない。だが、しつこく食い下がる連中もいてね。文献を調べたところ、君のホール効果の論文を見つけた。どうやらこの国でこういう研究をしているのは君だけらしい。そこで聞きたいのだが、本当にそんな現象があると思うか?」
私は、できるだけ控えめに「何かしらの可能性はあるかもしれません」と答え、最近の実験について説明した。すると、相手は軽蔑を含んだ長い沈黙を返してきた。そこで私は、バックマン教授が私と一緒に研究していることを付け加えた。その瞬間、空気が劇的に変わった。彼は戦時中、電子顕微鏡の研究でチャーリーのことを知っていた。そして彼は、私がそのセッションをまとめて、追加の講演者の手配もしてくれないかと依頼してきた。
選べる研究者はそれほど多くなく、その中にはぞんざいな研究をしている者もいた。私はフランク・ブラウンを招待し、発表済みの研究内容に基づいて数名を選んだ。ほぼ準備が整った頃、また電話がかかってきた。強いドイツ訛りの男が、ディートリッヒ・バイシャーだと名乗った。
「あなたのホール効果の論文を読みました」と、彼は切り出した。
「どうやら私たちには共通の関心が多いようです」。
彼は、海軍のために磁場の生体影響を研究しており、公表されていない仕事を多く抱えていると説明した。当時、彼は "無磁場状態null field"、つまり磁気が完全に存在しない環境で人間の被験者にどんな影響が出るかを調べる大規模な実験を進めていた。私は、どうやってそんな状態を作り出すのかと尋ねた。すると彼は、
「見に来てはどうですか。何か助言してもらえるかもしれない」と言った。こうして私はメリーランドへ向かった。
バイシャーは、シルバースプリングにある海軍水上兵器センター内のコンパス校正棟を使用していた。その建物は巨大だった。壁、床、屋根の至る所に張り巡らされた電気ケーブルは、地球磁場の3軸に "サーボ接続"(直接連動)されており、その結果、建物中央の直径約20フィート[約6m]の球体領域内で磁場が打ち消されていた。このエリアでは数名の男性が生活し、実験を受けていた。
バイシャーが自由に使えるリソースの多さには感心し、楽しい時間を過ごしたが、そこで得られた発見が最終的にどのような用途に供されるのか、私は疑問に思っていた。私の唯一の貢献は、その施設が建設された当時、地球磁場の低周波成分―1秒あたり1サイクル未満から約25サイクルの範囲の微小脈動―について誰も知らなかったことを指摘したことだった。それらは地球の電磁場全体に比べてはるかに弱いものだった。その結果、バイシャーの被験者たちは依然として、これらの周波数で脈動する極めて弱い磁場にさらされていた。そして私は、すべての脳波がまさに同じ範囲にあることから、その成分こそが生命にとって最も重要な要素の一つではないかと疑っていた。おそらくこの要因の結果として、無磁場実験は決定的な結論に至らなかったが、私はバイシャーに MITの会議に出席し、電磁場が胚の発達に影響を与える可能性を示唆する過去のデータを発表するよう依頼した。
私自身の発表は、懐疑的な聴衆を前に、これまでの研究のすべてを数分間に詰め込もうとはしなかった。その代わりに、精神科医のハワード・フリードマンの協力を得てチャーリーと私が集めた証拠を提示した。それは、精神障害と太陽磁気嵐との間に何らかの関係がある可能性を示していた。この研究については第14章でさらに詳しく論じる。
MITでの会議は順調に進んだ。生体電磁気学という分野はまだ始まったばかりで、その研究者たちは、主流の生物学者のあいだに多くの賛同者を得られてはいなかった。いつものことだが、物理学者たちの方が耳を傾けてくれる傾向があった。しかし、私たちは互いにインスピレーションを共有した。私は、電磁エネルギーと生命の間に存在すると確信していた関連性を解明しようと、これまで以上に強い決意を持って研究室に戻った。
チャーリー、ハワード、そして私は、人間の脳における直流電位の挙動を調べることにした。サンショウウオに使用していた電極は人間用に拡大できなかったが、1週間も経たないうちにチャーリーは、人間の頭部から同等の精度で測定値を得られる電極を発明した。私たちはすぐに、サンショウウオの場合と同様に、意識の変化に伴い前後方向の電流が変動することを発見した。それは身体的または精神的な活動が高まった時に最も強く、休息時には減衰し、通常の睡眠時と麻酔時とでは方向が逆転した。この知見は、第13章で詳述されている実験へと直結し、催眠や痛みの知覚がどのように機能するかについて多くのことを教えてくれた。
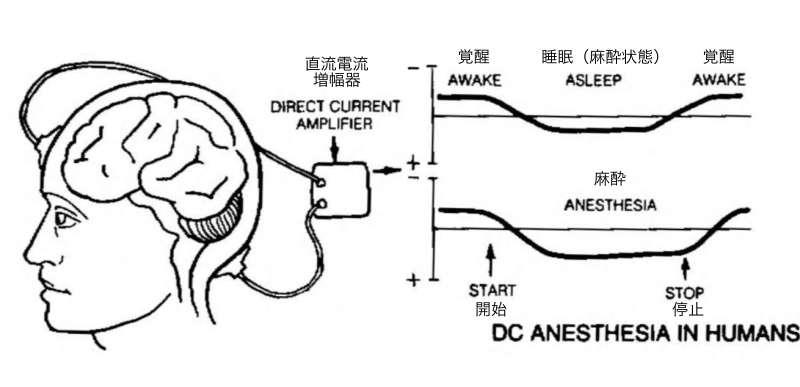
※ベッカーが行った "微弱な直流電流でヒトを麻酔状態にできる"という非常に大胆な実験の概念図。
・直流電流を流す
・脳の電気活動が変化
・覚醒 → 麻酔状態(ASLEEP) に移行
・電流を止めると 麻酔が解除(AWAKE)
つまり:
・麻酔は化学だけでなく"電気"でも起こせる
・神経系は直流電流に対して強い反応を示す
というベッカーの神経電気生理学の核心に触れる図。
ちょうどその頃、私はメリル・ローズから、動物科学界の最大級のイベント、国際動物学会議で講演するよう招待を受けた。これは単なる年次大会ではなく、理事たちが会議を開くに足る十分な進展があったと合意した場合にのみ開催されるものだ。1963年8月に開催されたこの会議は、1889年の第1回以来、わずか16回目だった。その場に立ち会えたことは光栄であり、会議自体も特に重要なものだった。なぜなら、農薬汚染、絶滅危惧種の保護、人口過密、都市の無秩序な拡大といった生態学的緊急事態に、科学が公式に向き合った最初の機会の一つだったからだ。
私にとってのハイライトは、論文を発表したとき、聴衆の中に大学時代の生物学の恩師、ラルフ・ボーエン博士の姿を見つけたことだ。それは私にとって大きな喜びだった。彼は、科学的な厳密さと生命への深い敬意を併せ持つ稀有な教師で、その独特の在り方が私を強く触発してくれた。発表のあと、彼はいつもの慎重な口調で、こう言った。
「やるじゃないか、ベッカー。この研究、ぜひ続けてみなさい」
私が医学博士号を持っていても基礎生物学への情熱は変わらないと伝えると、彼はこう言った。
「そうであってほしい。変化を起こす者は、決して歓迎されないことを忘れないように」
その言葉は私にとって大きな励ましだった。それに自分が多少なりとも成果を上げた姿を彼に見せられたことは嬉しかった。
その最初の実験から始まって、損傷電流の研究に没頭した4年間で、本当にいろいろなことが起きた。あの最初の発見は巨大な広間の扉を開けたようなもので、そこから魅力的な道が四方八方に伸びていた。これこそ、まさに自分の生きるべき世界だ! 研究室を一歩も出ずに、ニューギニアの未踏の密林を探検するのに匹敵する刺激的な旅を続けていた。神経と脳の研究は、生命そのものに対するまったく新しい概念へと私たちを導き、その意味は少しずつ姿を現し始めていた。その一方で、私と同僚たちは治癒のプロセスの研究も続けており、そこから得られる洞察と実際的な応用は、私の情熱を十分すぎるほど証明してくれた。
第6章 気難しい遺伝子
生命の本質に関する根本的な問いには強い関心を抱いていたものの、私は何といっても整形外科医であり、患者を助ける手立てを見つけることに意欲的だった。さらに、"アーチファクト・マン"とその仲間たちを納得させるため、チャーリーと私は生体組織における半導体特性の直接的な検証法を探していた。ホール効果やカエルの神経の凍結は、それぞれ半導体の特性を示していたが、標準的な工学用語でそれを裏付けるものではなかった。残念ながら、当時知られていた直接的な検証法はすべて、結晶でのみ機能した。電極を当てても潰れない、ブロック状に削り出せる素材が必要だった。唯一の可能性は骨だった。
多くの生物学者や医師にとって、骨は実に退屈な存在だ。骨は、ほとんど何も起こらない案山子のような棒の集まりに過ぎず、より繊細な構造を支える単なる小道具のように見える。私の患者の多くは、医師たちが骨を敬意を持って扱うべき生きた組織だと認識できていなかったために、悲惨な状態にあった。整形外科手術は大工仕事のようなものだという誤解はよくある。扱いにくい骨折をネジやプレート、釘でつなぎ合わせればよいだけだ。術後に骨片がしっかりと固定されれば、それで終わりだ。これほど真実からかけ離れたことはない。どんなにしっかりと固定しても、骨が癒合しなければ骨片は緩み、その手足は使えなくなってしまう。
骨は神殿の柱
骨格は、このような無神経な扱いを受けるべきではない。
デボン紀、ほぼ4億年前に現れた最初の本格的な魚類による骨の発達は、驚くべき成果だった。これにより、動物は文字通りの意味でも比喩的な意味でも、迅速かつ効率的に進化することが可能になった。骨は体内にあり、脱皮の際に外骨格が脱ぎ捨てられて無防備な状態になってしまうのとは異なり、その個体とともに生き、成長し続けることができる。また、筋肉を付着させ、動物の体躯を大きくするための最も効率的なシステムでもある。
骨の構造そのものもまた、驚くべきものだ。圧縮には鋳鉄より強いのに、X線で細胞を死なせたり、もともと乏しい血流を断ってしまうと、骨はたちまち泥のように崩れてしまう。実際に生きている部分、骨細胞は、全体の20%にも満たない。残りの部分の基質は、単なる均質な"コンクリート状の固まり"ではない。それは二つの異なる材料からできている。身体全体の主要な構造タンパク質の長鎖の繊維状タンパク質コラーゲンと、主にリン酸カルシウムからなる結晶性鉱物アパタイトだ。電子顕微鏡で見ると、コラーゲンとアパタイトの結びつきは分子レベルに至るまで高度に秩序立っていることがわかる。コラーゲン繊維には横方向の隆起した帯があり、それが規則的な区画をつくっている。アパタイト結晶は、その帯の間にぴったり収まる大きさで、繊維のまわりに鱗のように沈着している。
豆知識:骨は"硬い塊"ではなく、コラーゲンの柔らかい網にアパタイトの結晶が精密に組み込まれた"複合材料"。ベッカーがここで語るのは、その美しい秩序。ここでの"コンクリート"は、均質な固体の比喩。
この精巧さは、さらに高い階層の構造でも続いている。コラーゲン繊維は、中心軸のまわりに互い違いの螺旋(いわば二重らせん)の層を幾重にも巻きつけるように並んでいる。骨細胞[オステオサイト]は、これらの層の中に埋め込まれており、それらの層は数ミリほどの長さをもつ単位構造、オステオン[骨単位]を形成している。各オステオンの中心には細い管があり、その中を血管と神経が走っている。そしてオステオン全体は、骨に加わる力の最大応力線に沿って、きわめて合理的に配置されている。その結果、骨は加わる力に最もよく耐えられる、まさに必要な形そのものになる。
豆知識:🦴 骨の階層構造「骨は神殿の柱──精密すぎる階層構造」
【レベル1:分子】
└─ コラーゲン分子(長鎖の繊維状タンパク質)
└─ アパタイト結晶(リン酸カルシウムの結晶)
【レベル2:繊維(フィブリル)】
└─ コラーゲン分子が束になって繊維を形成
└─ アパタイト結晶がコラーゲン繊維の“帯”の間に
鱗のように規則正しく沈着する
【レベル3:層(ラメラ)】
└─ コラーゲン繊維が互い違いの螺旋(ダブルヘリックス状)に
巻きつくように並ぶ層構造
└─ 骨細胞(オステオサイト)がこの層の中に埋め込まれる
【レベル4:オステオン(骨単位)】
└─ 数ミリの長さをもつ円柱状の基本構造ユニット
└─ 中心に"ハバース管"があり、血管と神経が通る
└─ ラメラ(層)が同心円状に積み重なってできている
【レベル5:骨全体】
└─ オステオンが“最大応力線”に沿って配置される
└─ 力のかかり方に応じて最適な形状に成長する
└─ まさに "神殿の柱"のように、強く、しなやかで、合理的
🦴 ひと目でわかるイメージ(階層が上に行くほど大きくなる)
分子
↓
繊維(フィブリル)
↓
層(ラメラ)
↓
オステオン(骨単位)
↓
骨全体(応力線に沿って配置)
骨には驚くべき成長能力があり、その方法は三つある。子どもの時期、四肢の各長骨には一つか二つの成長中心、骨端線epiphyseal plateがある。これは軟骨でできた組織で、その先端は絶えず成長し、後方では骨へと置き換わっていく。骨が適切な長さに達するとこの過程は止まり、残った軟骨は骨の端にある骨端epiphysisとなる。骨端線の"閉鎖"は、身体の成熟度を示す指標だ。
骨は治らない。一見すると矛盾して聞こえるが、これは文字どおりの意味だ。骨折がくっつくのは、折れた骨そのものが再生するからではなく、他の組織から新しい骨が作られ、その新しい骨が折れた端同士をつなぐからだ。骨の成長を骨折治癒の一部として語ることはあるが、もともと存在していた古い骨には、成長する能力はない。第1章で述べたように、骨折部で新しい骨を作り出す組織は二つある。
ひとつは骨を包む線維性の膜、骨膜periosteumだ。骨膜の最も内側の層にある細胞が、骨形成osteogenesisの力をもつ。骨折が起こると、これらの細胞が何らかの仕組みで "スイッチが入る"。それらは細胞分裂を始め、その娘細胞の一部は骨芽細胞osteoblastへと分化し、骨のコラーゲン繊維を作り始める。その後、血清中からアパタイト結晶が沈着し、コラーゲン繊維の上に結晶が凝集していく。
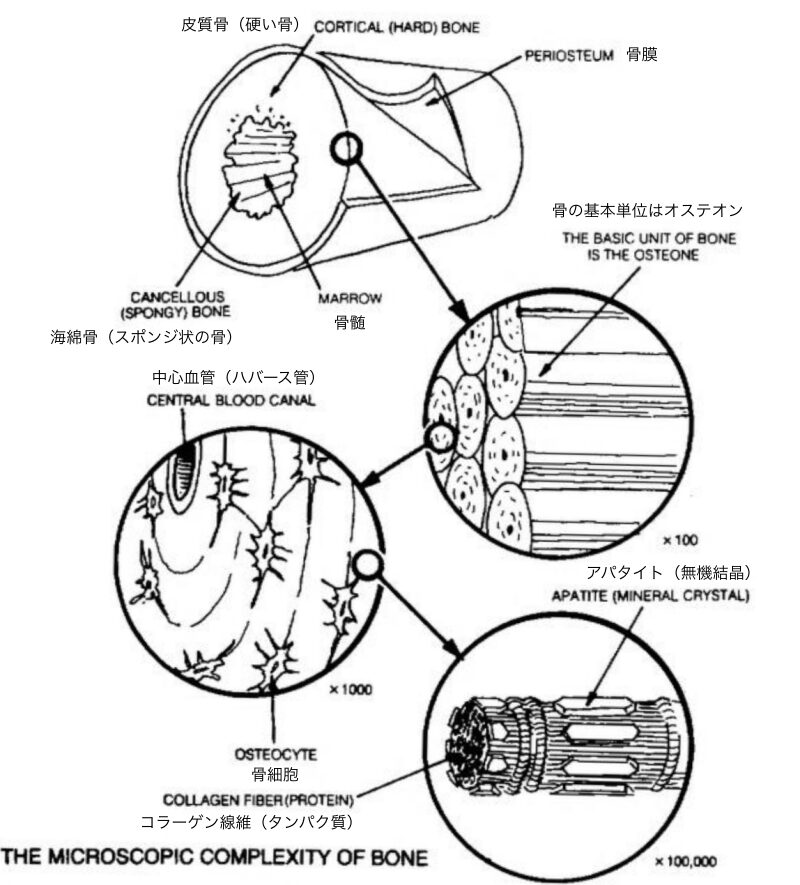
骨折を治癒させるために新しい骨を形成するもう一つの組織は骨髄だ。その細胞は脱分化して芽体を形成し、骨折の中央部を満たす。その後、芽体の細胞は軟骨細胞へと変わり、さらにその後、より多くの骨芽細胞へと変化する。この過程は真の再生であり、再生するサンショウウオの四肢と同じ細胞変化の順序に従っている。
医師が骨折を修復するためにどのような処置を行うにせよ、骨膜と骨髄腔[腕や脚などの骨の内部に存在する空洞部分]を損傷から守らなければならない。残念ながら、プレート、スクリュー、釘の適用は往々にしてその逆の効果をもたらし、自然の治癒を助けるどころか、治療自体が治癒を妨げてしまう。
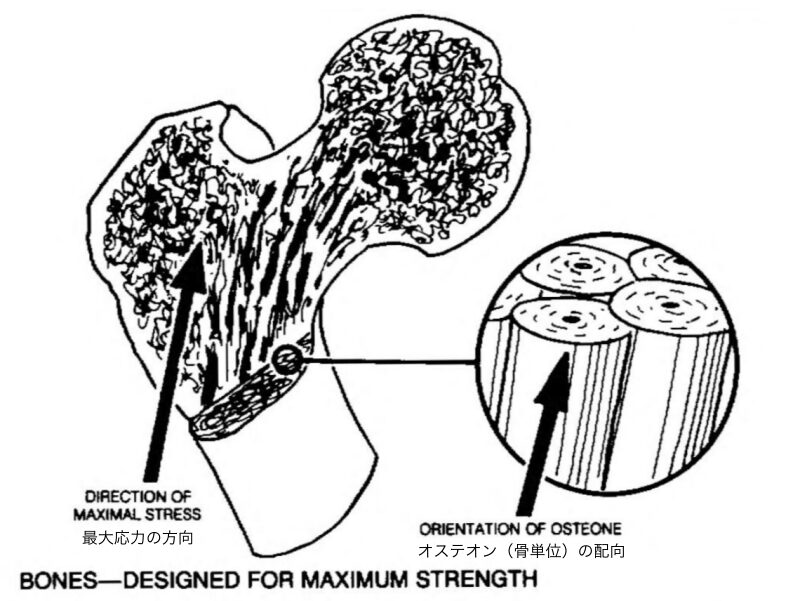
※骨が "力の流れに合わせて内部構造を再配置する"というウォルフの法則の最も基本的な視覚化。
・骨にかかる最大応力の方向に
・オステオン(骨の柱状構造)が整列する
・その結果、骨は最小の材料で最大の強度を得る
つまり:
・骨は "力の方向を読む"構造体であり、
・内部のオステオンは応力線に沿って自動的に並び替わる。
研究者の視点から言えば、ここで問われるのは、骨膜と骨髄の細胞を活性化させるものは何か、ということだ。
骨髄の場合、それはサンショウウオの切断された脚の細胞を活性化させるのと同じ因子だろうと推測できる。
骨に特有の、三つ目の成長過程がある。それはウォルフの法則に従うもので、19世紀末にこの法則を発見した整形外科医 J・ウォルフにちなんで名付けられた。基本的に、ウォルフの法則は、骨がストレスに反応し、その持ち主が求める要求に最も適した形状へと成長することを示している。骨が曲げられると、片側は圧縮され、もう片側は伸張する。一方向に継続的に曲げられると、圧縮された側を補強するために余分な骨が成長し、伸張された側からは骨が吸収される。まるで橋が、交通量のほとんどが片側の車線に集中していることを感知し、その側に追加の梁やケーブルを設置しながら、反対側からはそれらを撤去するようなものだ。その結果、テニス選手や野球の投手は、ラケットを振る腕や投球する腕の骨が、もう一方の腕に比べて重く、形状も異なる。この能力は若年期に最も高いため、小児の骨折では、手術をせずに手技で骨端を優しく整復し、完全ではないにせよ接合させるのが最善なことが多い。ときどき一番むずかしいのは、軽い曲がりならウォルフの法則に従って数か月で自然にまっすぐになることを、親御さんに納得してもらうことだ。
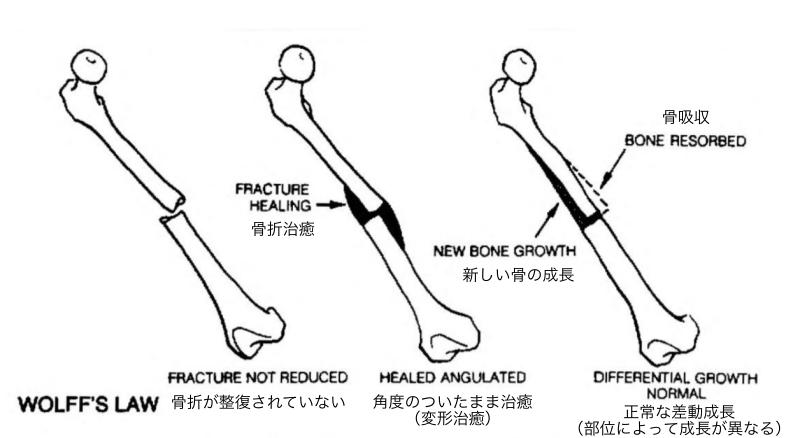
※"骨は力のかかり方に応じて形を変える"というウォルフの法則の基本的な現象をまとめている。
・骨折が正しく整復されていないと
→ 力の流れが変わる
・その力の流れに従って
→ 新しい骨が "ズレた方向"に成長する
・結果として
→ 角度のついたまま治癒する(angulated healing)
つまり:
・骨は "力の方向"を読み取り、その方向に合わせて成長する
・その成長は "差動的(differential)"で、部位ごとに異なる
ウォルフの法則による再構築が起こるのは、圧縮応力がかかる表面では骨膜が新しい骨を作るよう刺激され、逆に引張応力がかかる場所では骨が溶かされるからだ。研究者にとっての問題は、再び同じところに戻る。すなわち、いったい何が骨膜の細胞を"オン"にするのか?
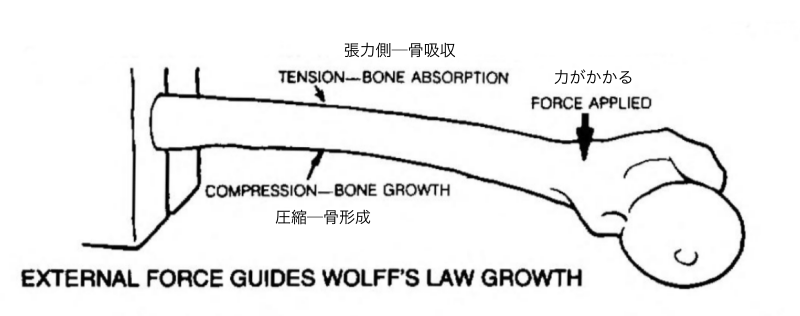
※ウォルフの法則を電気的メカニズムで説明するための最もシンプルな図。
・外力が骨にかかる
・コラーゲンが変形し、圧電効果で電気が生じる
・その電気信号は 部分的に整流されて極性が生まれる
・圧縮側(-)=骨が成長
・張力側(+)=骨が吸収
つまり:骨は "力 → 電気 → 成長方向"という電気制御システムで動いている。
1961年初頭の整形外科学会で、サンショウウオの損傷電流に関する論文の発表を終えると、数人がステージに上がってきて質問をしてきた。その中には、コロンビア大学で研究を行っていた若き整形外科医、アンディ・バセットもいた。会話の中で、私たちはウォルフの法則を検証するための切り口―圧電性―を思いついた。
簡単に言えば、これは一部の物質が機械的応力を電気エネルギーに変換する能力のことだ。例えば、圧電結晶を強く曲げてわずかに変形させると、その中に電流のパルスが流れる。要するに、圧縮によって結晶格子内の電子が元の位置から弾き出される。電子は圧縮された方向へと移動するため、曲げられた結晶の内側の曲面には負の電荷が生じる。応力をかけ続けると電位はすぐに消えるが、応力を解放すると、電子が元の位置に戻る前に跳ね返るため、等しく逆向きの正の電流パルスが現れる。
再生に先立って通常より強い負の電流が生じることが私の実験で示されていたため、バセットは、骨が圧電性を持ち、曲げによる負の電荷がウォルフの法則に基づく適応的[力学的適応]な成長を刺激しているのではないかと提案した。それを確かめるため、私たちは様々な動物の生きた骨と死んだ骨の両方を調べたところ、予想通り、曲げると即座に電位が生じることが分かった。圧縮された側は負に、伸張された側は正になった*。
* 実験の報告を書き上げた後で、同じことが以前に行われていたと知った。日本の整形外科医・保田岩夫が1954年に骨の圧電性を示し、1957年には物理学者・深田栄一とともにそれを確認していた。私たちは彼らの先行研究に触れつつも、手法が異なり、英語での最初の報告だったので論文を発表した。
※『生体電気・物理刺激による骨・軟部組織修復法』 編集:日本生体電気・物理刺激研究会
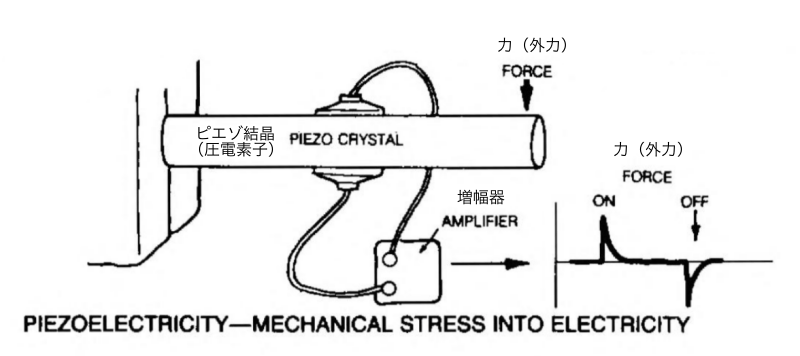
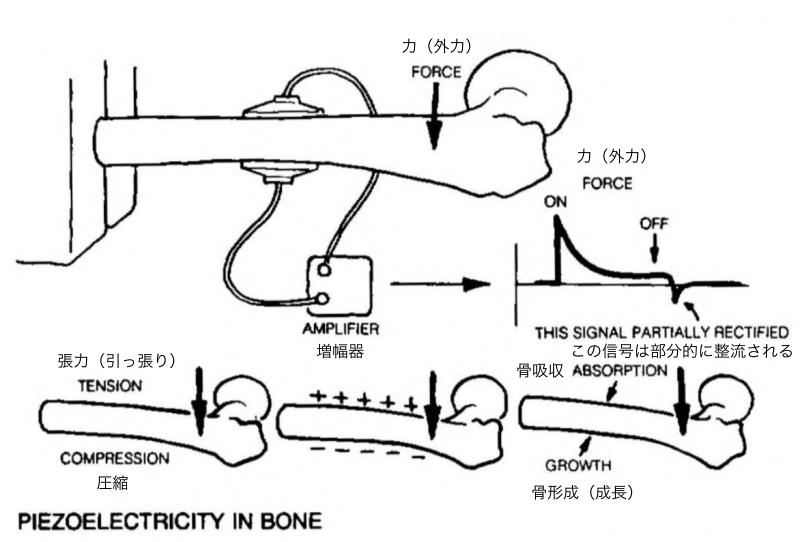
※この図は、骨に力が加わると:
・コラーゲンが変形し
・圧電効果で電気信号が生まれ
・その信号が 部分的に整流されて極性が生じる
・圧縮側(-)では 骨が成長
・張力側(+)では 骨が吸収される
という、ウォルフの法則の電気的メカニズムを示している。
さらに、応力を解放した際に現れた逆電位は、最初のものほど大きくはなかった。これはまさに当然の結果だった。もし負の電圧が成長の刺激だとしたら、正の反発電圧を打ち消す何らかの仕組みが存在しなければならなかった。そうでなければ、成長のシグナルが相殺されてしまっていたはずだ。電子工学的に言えば、固体整流器、すなわちPN接合ダイオードが存在しなければならなかった。
名前こそいかめしいが、この装置そのものは実に単純だ。これは、信号の正(P)または負(N)のいずれかを除去するフィルターだ。第4章で述べるように、結晶格子内では、自由電子として、あるいは "ホールholes"として電流が流れる。このホールは、チェッカーゲームでビー玉を動かす際に穴が移動するように、位置を移動する。電流はP型半導体からN型半導体へは流れるが、その逆は流れないため、この二つの接合部は電流をフィルタリング、すなわち整流する。
この装置がなければレコードプレーヤーは成り立たない。スタイラス[針]のダイヤモンドやサファイアの結晶は、レコードの溝をなぞると、その形の変化によってごくわずかに変形する。結晶はその応力を電気信号に変換し、その信号が増幅されて私たちの耳に届く。しかし、変形した瞬間のパルスと、元に戻る瞬間のパルスの両方を聞いたら、ただの雑音にしかならない。そこで回路に整流器を入れる。整流器は電流を一方向にしか通さないので、二つのパルスが互いに打ち消し合うことがない。信号は整流され、スピーカーに送れば音楽として聞こえる。骨の"解放パルス" が "変形パルス"よりずっと小さいという事実は、整流が起きている証拠だと、バセットと私は確信した。
一口メモ:ここで説明されているのは、現在一般的なMM/MC型カートリッジではなく、結晶の圧電効果を利用して電気信号を取り出す"圧電式ピックアップ"の原理。1950年代には広く使われていた方式で、ベッカーの説明はその仕組みに基づいている。
一口メモ:なぜ“解放パルスが小さい”と整流の証拠になるのか?
圧電体(骨や結晶)は、①押した瞬間(変形)と ②離した瞬間(解放)の両方で電気パルスを出す。本来なら、この二つのパルスは、+(変形)と -(解放)のようにほぼ対称の大きさで現れる。ところが、整流(rectification)が起きると、電流が一方向にしか流れないため、片方のパルス(解放パルス)が弱くなる。つまり、"変形パルス ≫ 解放パルス"という非対称が見えたら、回路のどこかで "整流"が働いている証拠になる。本来は同じ大きさで出るはずの二つのパルスが、片方だけ小さくなっている → 一方向だけ通す"整流"が起きている。これがベッカーとバセットが "骨の電気信号は整流されている"と確信した理由。骨は、電気を生むだけではなくて整流までしているという、生命の回路としてめちゃくちゃ面白いところ
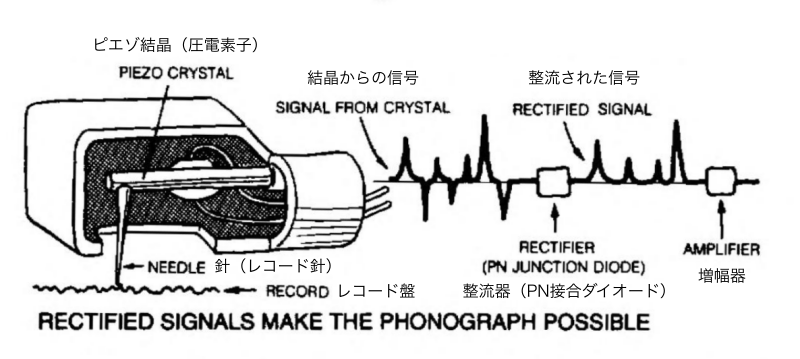
※この図は、レコード再生の仕組みを例にして:
・圧電素子(ピエゾ)=コラーゲンの圧電効果
・整流器(PN接合)=アパタイト–コラーゲン接合部
・増幅器=生体の電気応答
という対応関係を示している。
つまりベッカーの主張は:
・骨は "ピエゾ素子+PN接合ダイオード"のように働き、
・力学的刺激を"整流された電気信号"に変換して成長を制御する。
もし負の圧電信号が成長を刺激するのなら、負の電流を用いて自ら骨の成長を誘導できるかもしれない*。私たちは18匹の犬でこのアイデアを試した。片方の後脚の大腿骨にバッテリーパックを埋め込んだ。電極には、電気化学的な刺激を最小限に抑えるため、非反応性金属の白金を使用し、ドリルで開けた穴を通して骨髄腔に直接挿入した。対照群として、電池を装着していない装置も用意した。3週間後、通電群の装置では、陰極[マイナス極]の周囲に大量の新生骨が形成されていたが、陽極[プラス極]の周囲にはまったく形成されていなかった。対照群では、どちらの電極の周囲にも骨の成長は見られなかった。
* 保田博士とその同僚たちもすでに同様の実験を行っていたが、彼らの結果は電極からの刺激に反応して骨が成長する能力によるものだったようだ。彼らは交流電流を使用していたが、現在では交流電流には直接的な成長促進効果がないことが分かっている。
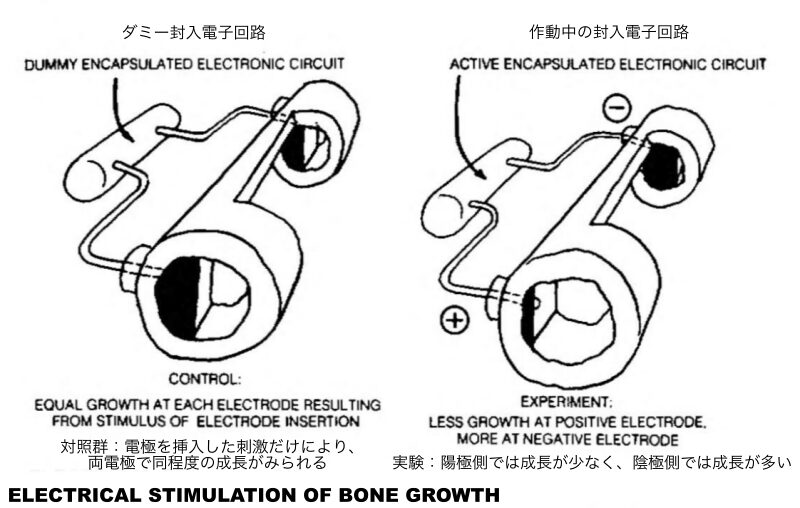
※この実験は、ベッカーが提示した"電気が骨成長を方向づける"という理論を直接裏づけるもの。
・電極を挿すだけでも多少の成長は起こる(対照)
・しかし 電流を流すと
・陽極(+)=成長抑制
・陰極(-)=成長促進
つまり:
・骨は電気刺激に対して極性依存的に反応する
・陰極側に骨が成長し、陽極側では抑制される
・骨の成長方向は"電気"で制御できる
という、ベッカーの電気生物学モデルの核心。
結果には興奮したが、振り返ってみると、この研究を発表したとき、私たちは重大な誤りを犯していたと思う。私たちは、自分たちの頭の中でも、そして論文の上でも、サンショウウオの損傷電流に見られる負電位、骨の成長を刺激した負電位、そして圧電効果の研究で得られた負電位を、同じものとして混同してしまっていた。私たちはそれらが等価のように扱ってしまったが、実際にはまったく別物だった。圧電効果で得られる電位は骨の外側で測定され、機械的な応力が加わったときにだけ現れる。それは一過性であり、おそらく骨膜こそがその標的組織だった。
一方、インプラント実験では、骨の内部、骨髄腔に連続的な直流電流を流していた。私たちが刺激していたのは、ウォルフの法則に関わる圧電的制御系ではなく、骨折治癒における"再生のための直流制御系"だった。
しかし私たちは、その違いを専門家の読者[科学論文を読む専門家(研究者・科学者)]に明確に示さなかったため、多くの混乱を招き、その一部は20年後の今も残っている。その結果、多くの科学者は、骨が圧電性をもつから、電気刺激で骨が成長するのだと考えるようになってしまった。だが、骨折が治るとき、古い骨そのものは成長しないことを彼らの多くは理解していない。
さらに、私たちの技術を引き継いだ研究者たち─そして今日でも偽関節の治療に使われている(第8章参照)─は、基本的に同じこと、つまり骨髄への連続刺激を行っている。圧電パルスが刺激するように、骨膜を刺激しようとした者は誰もいない。私たち自身の混乱は、科学界が骨の電気刺激を"骨にだけ見られる取るに足らない特殊現象"として受け入れることを助長してしまった。その結果、私たちの実験と、本来の"再生"との関係は見失われてしまった。
一口メモ:ベッカーが犯した"最大の混乱"とは?
ベッカーたちは、3種類の"負電位"を同じものとして扱ってしまった。
① サンショウウオの損傷電流の負電位(再生のスイッチ)
② 骨の成長を刺激した負電位(骨髄側の直流制御系)
③ 圧電効果で生じる負電位(骨膜側の一過性パルス)
本来はまったく別の現象なのに、論文でも頭の中でも区別しなかったため "骨は圧電性だから電気刺激で成長する"という誤解が広まった。その結果、科学界は骨の電気現象を"骨だけの取るに足らない特殊現象[trivial]"として矮小化し、結果、ベッカーの実験と"本来の再生"との関係が見失われてしまった。
骨の内なる電気回路
チャーリー・バックマンと私は、骨の電気的性質をより詳細に調査し、ウォルフの法則がどのように作用するのか解明しようと決めた。私たちは、私がバセットと行った実験に基づいて仮説を立てた。骨基質は(二つの部分からなる)半導体だと仮定した。つまり、アパタイトかコラーゲンのいずれかがN型半導体であり、もう一方がP型だということだ。それゆえ、それらの接合面は自然なPN接合ダイオードを形成し、骨内の電流を整流するはずだ。
さらに私たちは、材料のうち片方のみが圧電性を持つと理論上想定した。応力を受けた骨の圧縮側では、正のパルスが除去され、負の信号が残ることで、骨膜細胞が刺激され、新しい骨が形成されると予想した。
私たちは、医療上の理由で患者から摘出した骨片から、並べて切断したサンプルブロックを数組作成した。各ペアの一方のブロックから、化学的にアパタイトを除去した。もう一方には、コラーゲンを溶解する化合物を処理した。その結果、得られた純粋なコラーゲンは黄色みを帯びてわずかにゴムのような感触があり、アパタイトは純白で脆かったが、それ以外は両方のブロックとも依然として骨のように見えた。
私たちの最初のステップは、骨を構成する材料を個別に半導体特性と圧電特性について試験することだった。コラーゲンはN型半導体であり、アパタイトはP型だと判明した。
次に、バセットと私が以前、骨全体に対して行ったのと同じ方法で、試料の圧電性を試験した。アパタイトは結晶だから、効果を示すのはアパタイトだけだと予想していた。しかし、実際にはコラーゲンが圧電発電体だとわかり、アパタイトにはその性質がなかった。こうして、PN接合の素地が整った―N型とP型の二つの半導体が、極めて整然とした形で結合された。
さて、ここからが私たちの仮説の重要な部分だ。PN接合における整流作用を検証する方法を考え出さなければならなかった。まさに重大な決定を下すべき時だった。
ここで、いわゆる"技術的な問題"にぶつかった。整流が起きているかどうかを調べるには、骨の中で本来どおりに存在しているコラーゲンとアパタイトに、それぞれ電極を当てる必要があった。ところが、アパタイト結晶は一つがわずか500オングストロームしかない。オングストローム(分光学の先駆者アンデルス・ヨーナス・オングストロームにちなむ)は、原子や分子を測るための単位で、非常に小さい。その500オングストロームという長さは、緑色光の1波長のわずか10分の1ほどにすぎない[※緑色光の波長は約500ナノメートル=5,000オングストローム]。今日の最も細いマイクロ電極でも幅は1ミクロン(1万オングストローム)あり、当時私たちが使えたものはそれよりずっと太かった。つまり、米粒を電柱で測ろうとするようなものだった。
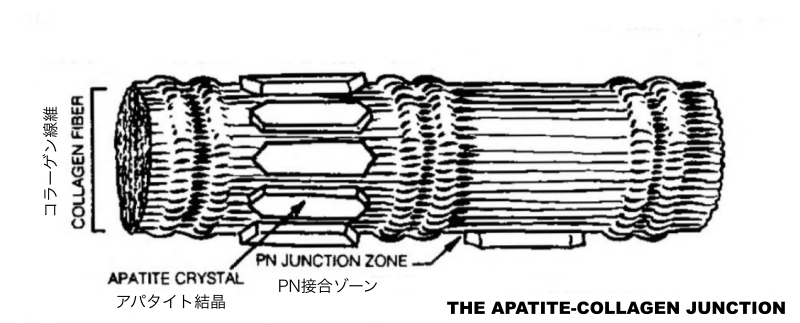
※この図は、ベッカーの電気生物学モデルの"最も基礎的な単位"を示している。
・アパタイト(P型的性質)
・コラーゲン(N型的性質)
この接合部が PN接合のように整流作用を持つと考えられている。
つまり:
・骨の電気システムの最小単位が "アパタイト─コラーゲン接合部"
・ここで生じる整流作用が、骨の成長方向を決める
というベッカーの理論のベース。
ある種の統計的な方法でやらなければならないだろう。骨の構造─オステオンに沿ってほぼ縦方向に螺旋状に配列した大きな繊維に、何百万もの小さな鱗片が接着している─から、私は次のように推論した。縦断面に電極を配置すれば、主にアパタイトに接触することになるが、繊維の横断面に電極を配置すれば、より多くの割合でコラーゲンに接続できるはずだ。もしその電極の接続方法が機能し、骨の中に整流器が存在すれば、試料に電流を流せるのは一方向だけになるはずだ。
まさにその通りになった。私たちの骨試料は市販の整流器ほど効率的ではなかったが、定電圧の電池から流せる電流の量は、一方向の方がもう一方よりもはるかに大きかった。
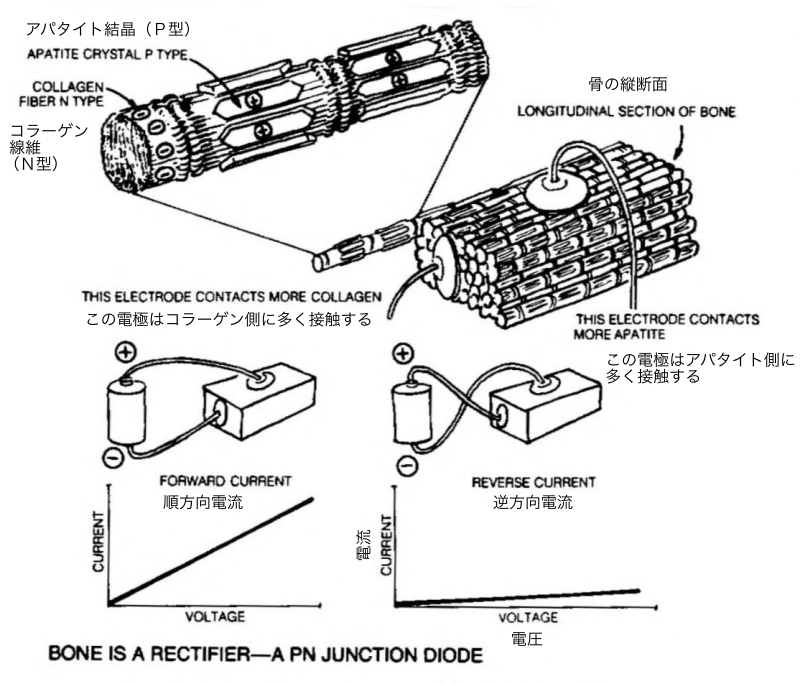
※この図は、骨の基本構造である
・アパタイト(P型半導体的性質)
・コラーゲン(N型半導体的性質)
が PN接合を形成しているというベッカーの仮説を視覚化したもの。
つまり:
・骨は "半導体ダイオード"として整流作用を持つ
・力学的ストレス → 圧電効果 → 電流 → 整流 → 成長方向が決まる
というベッカーの電気生物学的骨成長モデルのベース。
P型半導体からN型半導体への通常の電流の流れに逆らって"上り方向"に流れる電流は、逆バイアス電流と呼ばれ、我々はこれを利用して光電効果を調べた。多くの半導体は光からエネルギーを吸収し、その物質を流れる電流は増幅される。銀電極は光にわずかに敏感で、明らかな誤差を生じさせる恐れがあったため、骨に当たる光はごく小さなスポットになるよう装置を調整した。電圧を一定に保った状態で光を当てると、電流には紛れもない増加が見られた。
さて、もし骨に本当に整流器が含まれているなら、光電効果は電流の方向に敏感なはずだ。逆バイアス時の電流は、同じ光強度において順バイアス時の電流よりも大きく増加するはずだ。実験は単純だった。電池の極性を逆にして、光を当てた。電流値は以前よりも高くなった。整流器は本当にあった。
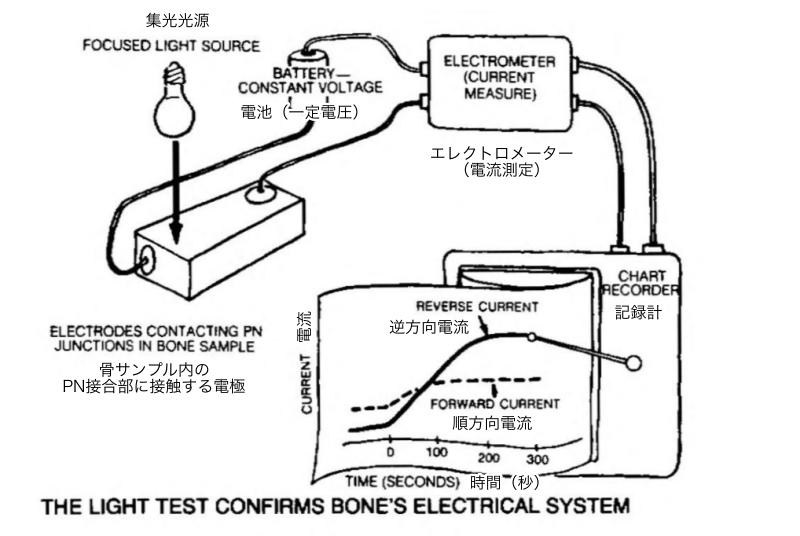
※図は、骨のアパタイト─コラーゲン接合部が PN接合のように振る舞うというベッカーの仮説を検証するためのもの。
・光を当てる
・PN接合が光電効果で電流を生じる
・骨でも同じ現象が起こる
・→ 骨は半導体的な電気回路を持つ
という流れを示している。
つまり:骨は"力学"だけでなく"電気"で成長を制御しているというベッカーの理論を強く支持する実験。
これで私たちは、ウォルフの法則における制御システム全体を追うことができるようになった。骨に機械的な応力がかかると、コラーゲンから圧電信号が生じる。この信号は双極性で、加圧と解放のたびに極性が反転する。その信号は、アパタイトとコラーゲンの間にある PN接合によって整流される。こうして整った[coherent]信号は、単に"力が加わった"という事実を示すだけではない。信号の強さは"どれほどの力か"を、極性は"どの方向から来た力か"を細胞に伝える。負の電位の側にいる骨形成細胞は、より多くの骨を作るよう刺激される。一方、正の側にいる細胞は活動を停止し、自分たちの基質[matrix]を分解して吸収に回る。もし骨の形成と吸収を一つの連続したプロセスと考えるなら、この電気信号は、応力に関する情報を細胞へ伝え、適切な応答を引き起こす"アナログコード"として働いていることになる。
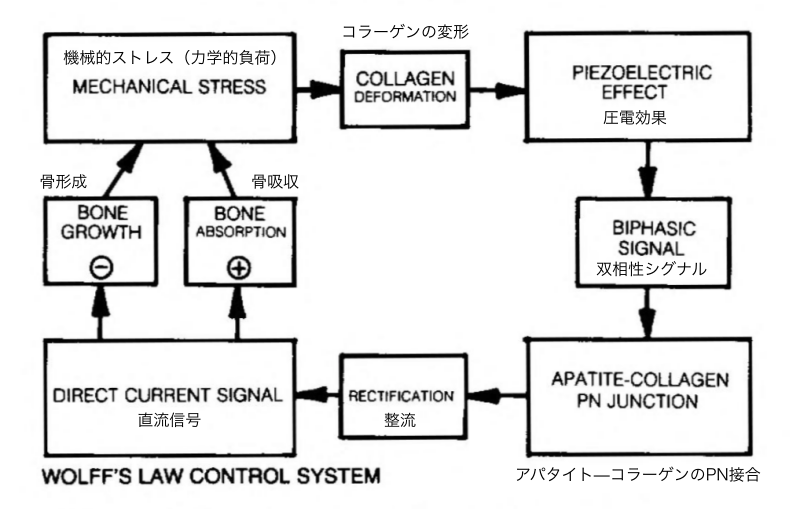
※図は、ベッカーが提示した"ウォルフの法則の電気的メカニズム"をまとめたもの。
・骨に力がかかる
・コラーゲンが変形
・圧電効果で電流が発生
・アパタイト─コラーゲン接合部が PN接合として整流
・直流成分が骨形成 or 骨吸収 を方向づける
・結果として 骨は力のかかる方向に成長する
つまり:
ウォルフの法則は "力学"ではなく"電気"で説明できるというベッカーの核心的な主張を視覚化した図。
こうして、応力がどのように電気信号に変換されるかが分かった。私たちは、力を電気に(あるいはその逆に)変換する装置─いわゆる変換器[トランスデューサー]を発見したことになる。ウォルフの法則のシステムには、もう一つの変換器が存在した。それは、電気信号を適切な細胞反応へと変換するメカニズムだ。次の実験により、この仕組みがどのように機能するかが明らかになった。
コラーゲン線維は、トロポコラーゲン[人間の体や皮膚などを形作る"コラーゲン線維"の最小構成単位となるタンパク質分子]と呼ばれる前駆体分子の、生スパゲッティのような長い棒状の構造から形成される。この化合物は生物学研究で広く用いられており、形成済みのコラーゲン(多くの場合、ラットの尾から)から抽出され、溶液にされる。その後、溶液のpHをわずかに変化させることで、コラーゲン線維が沈殿する。しかし、こうして形成された線維は、ごちゃごちゃしたフェルトのような塊であり、骨に見られるような層状の平行な繊維とは似ても似つかない。しかし、弱い直流電流を溶液に流すと、繊維は負極のまわりの力線に沿って、きれいに列をなして整列した。これは私たちの新しい発見とぴったり一致していた。というのも、曲げられた骨の圧縮側(負の電位側)には、まさにこの力線と同じ方向の電場が生じ、そこに形成される新しい骨のコラーゲン繊維も同じ向きに整列するからだ。
一口メモ:
・溶液中で弱い直流電流を流すと、コラーゲン繊維は負極のまわりの力線に沿って整列する。
・骨が曲げられたとき、圧縮側(負電位側)にも同じ方向の力線が生じる。
・だから、圧縮側に新しく形成される骨のコラーゲン繊維も同じ方向に整列するはずだ。
→ 溶液中の実験結果は、実際の骨の成長方向と一致する。
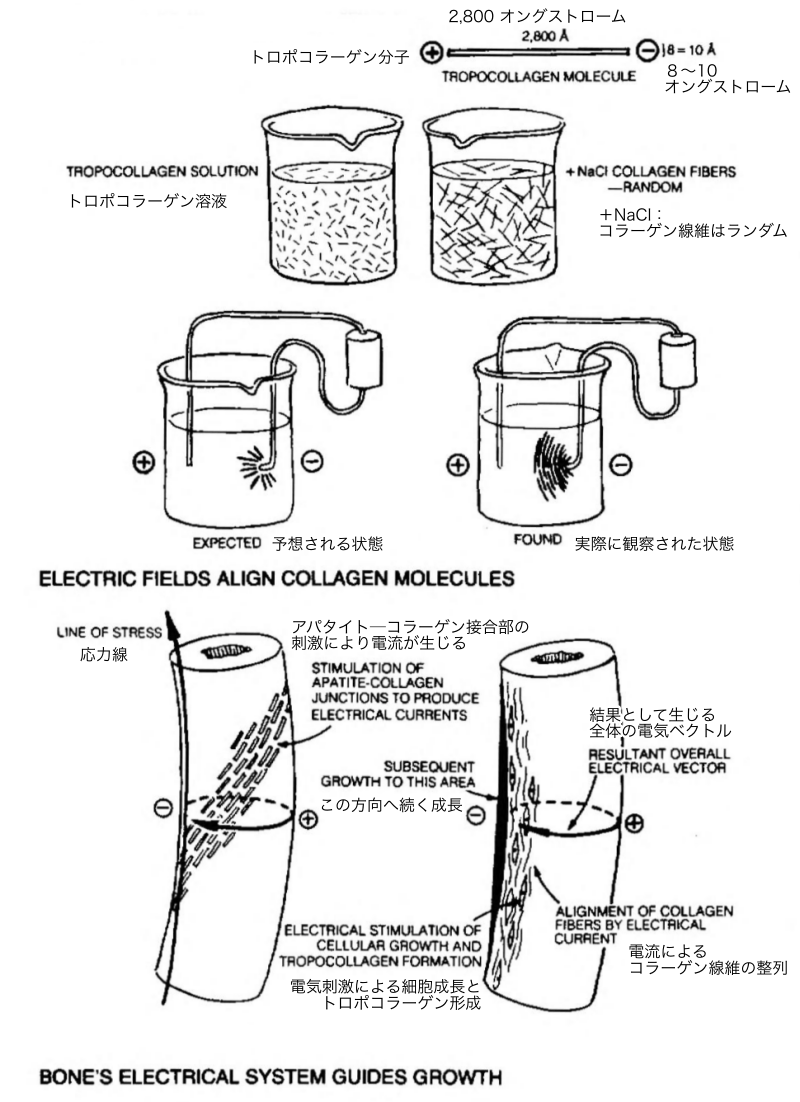
下の図:骨の電気システムが成長を導く
※上図は 電場がコラーゲンを整列させる"物理的メカニズム" を示し、下図は その整列が骨の成長方向を決める"生物学的メカニズム" を示している。
骨の成長は "電気 → コラーゲン整列 → アパタイト沈着 → 骨形成"という電気誘導プロセス。
成長過程の完全な回路図が作成できたのは、これが初めてのことだった。私たちにとっては、これはある種の注目すべき成果のように思えたが、論文は掲載されたものの、誰も注目してくれなかったようだ。科学界は生物学的半導体という概念を受け入れる準備ができておらず、生体組織にダイオードが存在するという考えは、私がその話をしたほとんどの人にとって、とんでもなく荒唐無稽に思えたようだ。そのため、私は追跡実験の論文を投稿しようなどとは、そもそも考えもしなかった。あまりにも奇妙すぎたからだ。
1960年代半ば、半導体素子がようやく市場に出回り始めた頃、PN接合の最も興味深い特性の一つはまだ活用されていなかった。順方向バイアスで電流を流すと、そのエネルギーの一部が光に変換され、表面から放出される。つまり、電気を流すと光る。今日では、発光ダイオード(LED)と呼ばれるこうした様々な種類の PN接合が、時計や電卓のデジタル表示として至る所に見られるが、当時は実験室の珍しいものだった。
私たちは、骨がLEDであることを発見した。多くの同様の材料と同様、電流を流して自ら光を放出させるには外部からの光源が必要であり、放出される光は人間の目には見えない赤外線の周波数だったが、その効果は一貫しており、否定しようがなかった。
仮説はすでに証明されていたが、チャーリーと私は、一つには確認のため、もう一つには面白半分に、骨の半導体特性についてさらにいくつかの実験を行った。一部の半導体が蛍光を発すること―つまり、紫外線を吸収し、その一部をより低い周波数の可視光として放出することは、すでに知られていた。私たちが確認したところ、骨全体は青みがかったアイボリー色を呈し、コラーゲンは鮮やかな青色を、アパタイトはくすんだレンガ色を放った。しかし、ここで説明のつかない矛盾が見つかり、それが最終的に多くの人々に恩恵をもたらす可能性のある発見につながった。コラーゲンからとアパタイトからの蛍光を発する光を合わせれば、骨全体からの蛍光を発する光が得られるはずだった。しかし、そうはならなかった。これは、骨基質に他の物質が存在することを示唆していた。それは、化学的分離の過程で洗い流されていた何かだった。
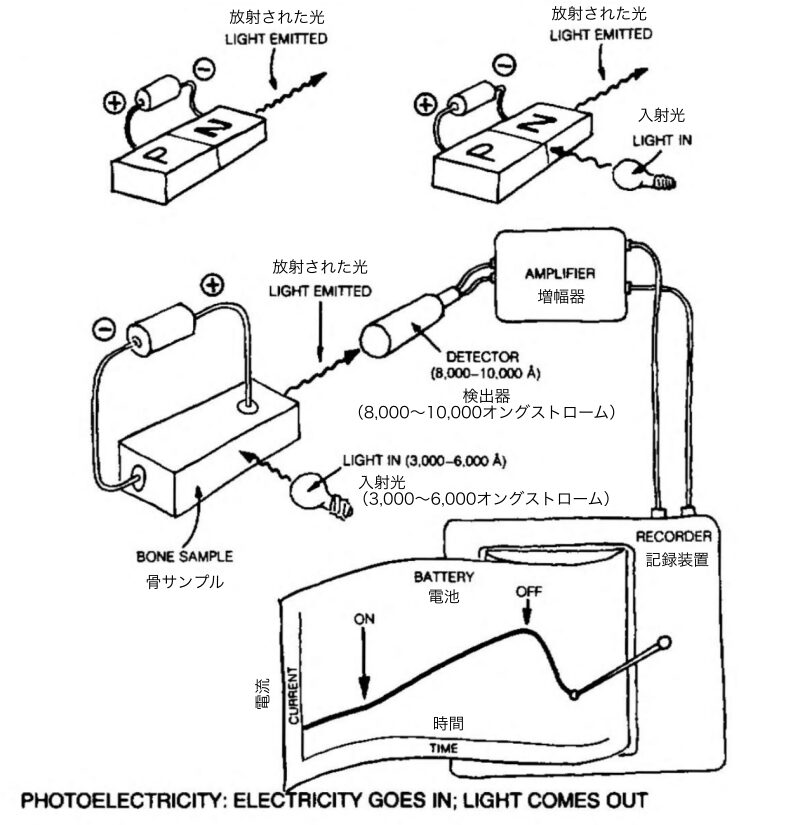
※光電効果を利用して、骨が発する微弱な光(バイオフォトン)を検出する装置の概念図
ベッカーが行った骨の光放射(バイオフォトン)測定実験 の概念図で、
・骨に電流を流す
・骨が微弱な光を放つ
・その光を 特定波長(3,000〜10,000 Å)で検出
・増幅して記録するという流れを示している。
ベッカーの主張では:骨は電気刺激に応じて光を放つ、光は遺伝子活性化の指標になり得るという重要なポイントを支える図
チャーリーと私は、その研究の方向で数年間行き詰まっていた。そんなとき、半導体素子の世界で "ドーピング[不純物添加]"と呼ばれる新しい技術が登場し、私たちの注意を引いた。半導体にごく微量の特定の鉱物を混ぜるだけで、その性質が劇的に変化する。どの元素を加えるかを選んで半導体をオーダーメイドで作る技術は、それ自体が一つの科学になりつつあった。この技術は、骨に含まれる微量元素のことを私たちに思い起こさせた。私たちはすでに、銅、鉛、銀、ベリリウムといった、いくつかの微量金属が骨に結合しやすいことを知っていた。ベリリウム鉱山の労働者に骨肉腫(骨のがん)が多いのは、ベリリウムが骨細胞の成長制御を狂わせてしまうためだ。放射性ストロンチウム90が有害なのも、骨に結合したあと、細胞を電離放射線で攻撃するからだ。もしかすると、骨に通常含まれる微量元素のいくつかが、半導体のドーピングのように、骨の電気的性質を変えているのではないだろうか。
その真相を突き止めるため、チャーリーと私は、電子常磁性共鳴(EPR)分光計と呼ばれる非常に複雑な装置を骨のサンプルに用いた。この装置の仕組みを簡単に説明するのは難しいが、基本的には、外部から印加された磁場によって電子の振動に生じる共鳴を検知することで、物質中の自由電子の数を測定するものだ。私たちはこれを使ってコラーゲンとアパタイト中の自由電子を測定したが、蛍光実験と同様の不一致が見られた。コラーゲンとアパタイトの自由電子を合計しても、骨全体から検出された数値には届かなかった。これにより、微量ミネラルの一部が洗い流されていたことは間違いないと確信した。
そこで私たちは、発想を逆にして取り組むことにした。さまざまな金属を少量ずつ含む溶液を用意し、その中にコラーゲンとアパタイトの立方体を浸して、どの元素が取り込まれるのかを調べた。
結果を検討したとき、この謎を解明する道筋が見えてきたと確信した。骨材料に結合していた金属はごくわずかだった。ベリリウム、銅、鉄、亜鉛、鉛、そして銀だ。吸着した原子の直径は、互いに正確な比率[分数関係]になっていた。つまり、結合部位は小さなくぼみで、そこには銀や鉛なら1個、鉄・銅・亜鉛なら2個、ベリリウムなら6個の原子がぴったり収まる大きさだった。
一口メモ:ベッカーの論理
吸着した原子の直径が "互いに正確な分数関係にある"(ある原子の大きさが、別の原子の 1/2、1/3、1/6… などの"正確な比率"になっている)ことを見つけた。
骨に吸着した微量金属の原子サイズを調べた。すると、それらの直径が互いに正確な分数関係にあった。
これは、骨の中の結合部位(recesses)が特定のサイズの"穴"として規則的に存在することを示す。
だから、銀・鉛 → 1個、鉄・銅・亜鉛 → 2個、ベリリウム → 6個が "ぴったり収まる"。つまり、骨の結合部位が "原子サイズの規則性"を持っているという発見。
これらの金属のうち、一つだけが固有の電子共鳴を示した。これは、その金属が骨の電気的性質に影響を与えうる多数の自由電子を持っていることを示唆していた。その金属は銅だった。私たちは銅のみを含む溶液を調製した。私たちは、銅のEPR(電子常磁性共鳴)信号が、コラーゲンと結合する際にはある値に、アパタイトと結合する際には別の値に変化すると予想した。それぞれの分子構造がかなり異なっていたため、それぞれが異なる方法で銅と結合すると考えた。
その結果には、私たちも信じられなかった。
結合によって確かに銅の共鳴は変化したが、その変化は両方の材料で同じだった。これを分析した結果、アパタイト結晶とコラーゲン繊維の表面には、特定の電荷パターンに囲まれた小さな窪みが存在し、銅の各原子がそこに収まっていると推測した。両物質で電荷のパターンが同じだったことから、結合部位は両表面で同一であり、それらが一直線に並んで結晶と繊維をつなぐ細長い空洞を形成していることが分かった。つまり、二つの結合部位が一致し、二つの銅原子が収まる閉鎖空間を形成していた。この銅結合の電気的力が、まるで木製のペグがアンティーク家具の部品同士を固定するように、結晶と繊維を結びつけていた。さらに、ペグと穴の電気的性質は、私たちが原子レベルで PN接合の正確な位置を突き止めたことを示唆していた。
この発見には、医学的な重要性が含まれている可能性がある。最も内側のアパタイト結晶がどのようにコラーゲンに結合するかという問題は、それまで整形外科医にとって解明不能な謎だったが、この発見は、アパタイト結晶が剥離して骨が変性する疾患、骨粗鬆症を理解する道を開いたかもしれない。このプロセスはしばしば脱灰[生物の硬組織からカルシウム塩の結晶が溶出する現象]と呼ばれるが、失われるのはカルシウムだけではない。これは加齢に伴う一般的な特徴だ。私は、骨から銅が何らかの形で失われることで骨粗鬆症が生じると推測している。これは化学的・代謝的なプロセスだけでなく、電磁気的な結合力の変化によって、いわばペグが "抜け落ちる"ことで起こる可能性がある。これは、体全体の電場の変化、あるいは体を取り巻く環境の電場の変化によって引き起こされる可能性がある。
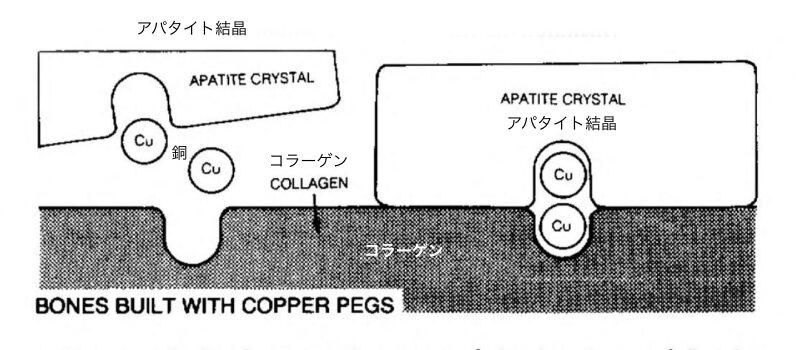
※ベッカーが示した"骨は金属を核にして成長できる"という驚くべき現象の視覚化。
骨の基本構造:コラーゲン(有機)+アパタイト(無機)
その"芯"として、銅(Cu)のペグを置くと骨が金属を足場にして成長する
つまり:
骨形成は「電気+結晶化」のプロセスであり、金属がその核(nucleation site)になり得るというベッカーの電気生物学的視点を象徴する図
骨粗鬆症は、米国およびロシアの宇宙計画において長年の懸念事項だった。飛行期間が長くなるにつれ、医師たちは骨から失われるアパタイトがますます増加していることを発見し、ソ連の初期のサリュート宇宙ステーションでの実験では、脱灰率が8パーセントに達した。深刻な問題が発生するのはアパタイトの損失が約20%に達した場合に限られるとされていたが、この傾向は憂慮すべきものだった。特に、カルシウム量の減少は、20%に達する前に神経系や筋機能に影響を及ぼす恐れがあったからだ。
直接の原因は、キャビン内の空気がすべて漏れ出す前に、故障した空気弁を閉じることができなかったことだったが、1971年6月末、ソユーズ11号による24日間の飛行で筋緊張が低下し[筋力低下による全身の虚弱]、身体が弱っていたことも、彼らの死に何らかの形で影響した可能性がある。
豆知識:"筋緊張(muscle tone)"は、力を入れていないときでも筋肉がほんの少しだけ収縮している状態のこと。姿勢を保つ、すぐに動ける準備をしている、血流を維持する、こういう"基礎の筋力"みたいなもの。宇宙では重力がないから、この筋緊張がどんどん落ちていく。
すると:立つ力、物をつかむ力、緊急時に素早く動く力、こういう "身体の基本性能"がガクッと落ちる。
宇宙での骨粗鬆症は、地球の磁場中を宇宙船が高速で移動する際に骨に生じる不自然な電流(半周ごとに極性が反転する)に起因する可能性もあるし、あるいは磁場の反転による直接的な影響の可能性もある。この異常(外部磁場の反転による影響)は、骨細胞の活動を直接変化させる可能性があり、無重力状態によってほぼ確実に乱されている骨の自然な電気系の異常にさらに上乗せされる形で起こる。慣れない外部磁場の反転は、銅の"ペグ"を弱める可能性もあり、同時に骨は地球で受けていた重力ストレスから解放された"反動状態[リバウンド※]"に常に置かれているため、"重力がないなら、骨は必要ない"という信号を生み出してしまう。無重力によって血液の分布が均一化されると、心臓はそれを過剰と認識し、その結果、カルシウムを含む体液やイオンが血液から引き出されることは分かっている。しかし、この影響はおそらく無重力状態のみに起因するものではない。スカイラブの宇宙飛行士たちは激しい運動を行っており、それによって骨には十分な負荷がかかっていたはずだからだ。彼らは激しい運動を行い、筋肉は発達したが、12週間のミッション期間中、脱灰率は依然として6.8パーセントに達した。
※"rebound"は、物理的な跳ね返りではなく、"重力が消えたことへの揺り戻し反応"。
ソ連側は当初、1977年から78年にかけて行われたソユーズ26号ミッションの前、あるいはその最中にこの問題を解決したと主張していた。このミッションでは、2人の宇宙飛行士がサリュート6号宇宙実験室で3ヶ月以上にわたり軌道上滞在した。その後、最長211日間無重力状態にいたソ連の宇宙飛行士たちには、骨粗鬆症による悪影響は見られなかったと報告されており、ソ連の宇宙医療責任者オレグ・ガゼンコは、3ヶ月を過ぎると症状が単に横ばいになったと述べた。しかし、この主張は後に公式に撤回された。私は、ソ連が宇宙ステーション内で地表の磁場を模擬することでこの症状を予防する方法を研究しているのではないかと推測している。おそらく、その方法はまだ期待したほどには機能していないのだろう。アンディ・バセットは、宇宙飛行士に、四肢の骨が受ける通常の重力ストレス信号を再現するように設計された装着型の電磁コイルを装着させることを提案したが、今のところ NASAは関心を示していない。
地球上の骨粗鬆症患者にとっては残念なことに、銅のペグに関する発見は、私が15年以上前に発表したにもかかわらず、いまだに追跡調査がされていない。チャーリーと私はその方向で研究を続けたいと思っていたが、一度に複数の主要な研究プロジェクトを継続することはできないと分かっていた。私たちは再生型成長の制御を主要な目標とすると決め、やむを得ず骨粗鬆症の研究は断念した。
電気が骨の成長を制御するという新たな知見を得て自信を深めた私たちは、代わりに神経の研究に戻り、神経電流がどのように再生を刺激するのかを詳しく調べ始めた。
血の中の驚異[血の中に、思いもよらない世界があった]
まるで神殿の奥の幕が突然引かれ、入門者と勘違いされたよそ者の私が、いきなり聖域へと案内され、秘儀の中心を目撃してしまったかのようだった。そこには、宝石のような細部をまとった生きたタペストリーが広がっていた。それらは乱痴気騒ぎの結婚式の客のように踊り、形を変え、自らの内側で幾何学の破片を操り、万華鏡のように姿を変え続けた。ときには太陽のフレアのような突起を伸ばし、それぞれの動きは互いに呼応していた。蜂の群れのように、彼らは明らかに互いを認識し、熱心に何かを伝え合っていたが、その内容は私には分からなかった。ただ、その光景が織りなす祝祭劇の美しさに、私は圧倒されるばかりだった。
照明が戻ると、講堂は急に色あせて、どこか現実味を失って見えた。私は、顕微鏡を通して観察され、最新のタイムラプス映像技術で記録された、様々な種類の普通の細胞が日々の営みを行う様子を見ていた。映像制作者は、自分を含め誰も、細胞が一体何をしているのか、またどのように、なぜそうしているのかは分からないと率直に認めていた。私たち生物学者、特に学生時代の形成期には、死んだ動物を解剖したり、構造をより見やすくするために染色された死細胞の標本を調べたりすることに、ほとんどの時間を費やしていた─かつて誰かが "彩色された墓石"と呼んだものだ。もちろん、生命とは構造というよりむしろプロセスだと皆知っていたが、構造の方がはるかに研究しやすかったため、私たちはついそれを忘れがちだ。この映像は、私たちの静的な概念が、実際の"生きる"という営みからいまだどれほどかけ離れているかを思い起こさせた。きらめく細胞の一つ一つが、やがて斑点のあるカエル一匹や人間そのものになり得るのだと考えたとき、これまでの私の研究は、生命そのものと同じくらい多様で広範なプロセス制御システムのほんの一面に過ぎず、それまでは私たちが全く知らなかった領域に過ぎないのだと、これまで以上に確信した。
この映画は、1965年に全米科学アカデミーが主催した骨折治癒に関するワークショップで上映された。これは、臨床部門の責任者たちに対し、最も有望な研究の方向性について教育するために企画された一連の会議の一つだった。ジム・レイという精力的な組織者が、アップステート・メディカル・センターの整形外科部長に就任したばかりだったが、ジムの卓越した手腕は科学的なものではなく、政治的なものだった。私は当時、研究活動に熱心で、ちょうど准教授に昇進したばかりだったため、ジムは私に自分の代理として出席するよう頼んできた。私はその依頼を断ろうとした。発言すれば、私の"電気骨electrical bones"に関する研究が、大物たちから冷ややかな反応を受けるだろうと分かっていたからだ。しかし、ジムは私の反対を押し切った。
会議の内容は概ね予想通りだったが、三つの明るい点があった。一つは、そのマイクロシネマティック・ビジョンだった。もう一つは、私の所属する部門から参加していたもう一人の代表者、デイブ・マレーという鋭い若手の整形外科医と知り合う機会を得たことだ。三つ目は、ジョン・J・プリチャード博士が同席していたことだ。
骨折治癒に関する私たちの知識に多大な知見を加えてきた英国の著名な解剖学者、プリチャード博士はこの会議の基調講演者だった。彼はすべての論文を査定し、最後にすべてを総括する、慈愛に満ちた父のような存在だ。デイブと私は、彼の講演を聞き逃すところだった。それまでのプレゼンテーションにはあまり感心しなかったし、新しいアイデアがほとんどなかったから、プリチャードも特に言うことはないだろうと思っていた。しかし、ワシントン空港行きのバスはプリチャード博士の昼食会での講演が終わるまで出発しなかったため、私たちは残ることにした。彼特有の、どこかイギリス人らしい気配りをもって、彼は私たちと同じ評価を下したが、誰の気分も害さないような言い回しでそれを伝えた。彼は、骨折の治癒は再生の痕跡と捉えるべきだと強調した。
これまでの骨折に関する研究の多くは、骨が癒合する際に何が起こるかを記述するにとどまり、それが "どのように" "なぜ" についてはほとんど触れられていなかった。プリチャードが指摘したように「骨の修復における様々なプロセスを開始し、誘導し、制御する要因については、あまり深く考えられてこなかった」。再生研究と同様に、これが骨折に関する最も重要な問題だと、彼は結論付けた。
デイブと私は、シラキュースへの帰りの便まで数時間待たなければならなかった。私たちは空港のラウンジに座り、骨折について興奮気味に語り合った。デイブは、私がサンショウウオの四肢再生において電流を発見したのだから、同様の要因が骨折の修復を制御している可能性は少なくともあり得ると賛成してくれた。骨におけるストレス適応(ウォルフの法則による成長)の制御システムを解明したばかりだった私は、骨の治癒に残存するその痕跡を通じて、より複雑な再生の問題に取り組む準備が整ったと感じていた。デイブと私は共同研究を行うことに決め、飛行機の中で実験計画を練った。一連の実験動物ごとに、同じ骨を標準化された方法で骨折させることにした。私は、骨折部とその周辺で治癒が進むにつれて生じる電気力を研究することにした。治癒の各段階で数匹を処置し、組織学の専門家デイブが、治癒組織の顕微鏡標本を作り、細胞の変化を調べることにした。その過程で、私たちは得られた知見を統合し、電気が細胞を誘導しているかどうかを確かめることにした。
最初の課題は、実験動物を選ぶことだった。最終的に人間の骨を理解しようとしていたため、できるだけ人間に近い動物を使いたかった。犬かウサギが望ましいと考えていた。しかし、治癒の各段階を十分に研究するには数十匹が必要だったが、これほど多くの大型哺乳類を飼育する資金も施設もなかった。ラットも考えたが、その一番長い骨は研究するには短かすぎた上、湾曲していた。私たちは、どの個体にも同じ条件で骨折を作れる、まっすぐで長い骨を探していた。
そこで、ウシガエルに決めた。購入も飼育も安上がりだったし、近くの池から自分で捕まえてくることさえできた。私はすでにウシガエルを扱う経験が豊富だった。何より良かったのは、成体のウシガエルの下腿には長い骨が1本しかなかったことだ。ほとんどの脊椎動物に見られる脛骨と腓骨が、ウシガエルでは脛腓骨[下腿を構成する二本の骨]に融合している。その長さは約2インチ[約5cm]で、細く真っ直ぐな骨幹を持っていた。
カエルと人間の間の進化的な隔たりについて私たちの懸念は、当時知られていたカエルの骨折治癒に関する文献を図書館へ行き読み込んだことで払拭された。プリチャード博士自身と、彼の学生 J・ボーデン、A・J・ルジカの二人は、カエルが人間と同じ方法で骨を修復することを突き止めていた。私たちの疑問はこうだった。何が骨膜細胞や骨髄細胞を刺激し、新しい骨を形成する細胞へと変化させたのか?
まず、カエルに麻酔をかけ、その小さな緑色の脚をすべて手作業でひと思いに折った。ただし、骨折部の周囲の骨膜を破らないよう、ある角度までしか曲げないようにした。私は、それらに小さな石膏ギプスを巻かなければならないことに気づいた─カエルが激しい痛みを感じているようだったからではなく、カエルの動きによって骨折した骨がずれてしまい、体系的な観察が不可能になったからだ。いずれにせよ、カエルは治癒していただろう。最初の60匹のカエルの中で、野生で足を骨折し、それを治癒させた2匹を見つけたが、ギプスを巻かれたのは間違いなく私たちのカエルが初めてだろう。
電気的変化は複雑だったが、どの骨折でもほぼ同じだった。二つの明確なパターンがあり、一つは骨膜に、もう一つは骨に見られた。骨折前、骨と骨膜の両方の足首側は、膝側と比較して1ミリボルト未満のわずかな負電位を持っていた。骨折の瞬間、骨折部位の上にある無傷の骨膜上の負電位は6~7ミリボルトまで急上昇し、一方で骨折部位の上下には正電荷領域が形成された。1週間後、骨膜の負電荷が足首に向かって正常に伝播する状態が回復した。骨折によって骨膜が破裂すると、その負電位は7ミリボルト以上にまで上昇したが、ぶら下がった下腿を切断すると、極性が即座に反転し、私の最初の再生実験におけるカエルと同様に、切断面から正の損傷電流が発生した。骨自体は、骨膜とは逆の短期的な電気的変化を示した。骨折端の各部位には最初の数時間にわずかな正電荷が現れたが、3時間後にはほぼゼロまで低下した。
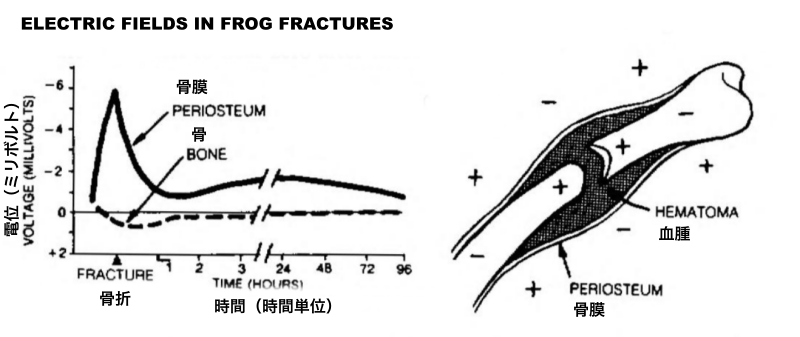
※カエルの骨折部、骨膜、血腫、骨折線、骨、それぞれの位置で、電位がどう変化するかを示している。
ベッカーの主張では:骨折治癒は"電場の変化"から始まる。カエルでは電場が強く、脱分化が起こりやすい。これが哺乳類との再生能力の差につながるという重要なポイントを支える図
この電気には二つの異なる発生源があった。脚の神経を切断すると、骨膜の測定値は劇的に低下した。これは、これらの電位が、骨膜および周囲の創傷領域へ向かう神経内の電流に由来していることを示している。神経がほとんど存在しない骨での測定値には影響が見られなかった。多くの圧電性物質は、構造が破断によって"歪んだまま"の状態に置かれると、その未解消の応力により、数時間にわたって電流を出し続ける。私はこれが骨にも当てはまると推測し、まもなく別の研究チームが最近それを実証したことを知った。つまり、神経由来と骨基質由来の二つの異なる電流が、極性の異なる電位を発生させており、それらは電池の電極のように機能していた。これらの生きた電極は、その正確な形状と強度が骨片の位置を反映した複雑な電場を作り出していた。つまり、その四肢は、自分自身のレントゲン写真を電気のかたちで描き出していた。
一口メモ:
・骨折すると、骨のコラーゲン・アパタイト構造が "歪んだまま"になる
・その歪みが圧電効果を生み続ける
・だから骨は "折れた瞬間だけでなく、しばらく電気を出し続ける"ということ。
つまり、骨折後の電気信号は"瞬間的なもの"ではなく、"残留応力による継続的なもの"という説明の核心。
最後の行は直訳すると「その四肢は、事実上、自分自身のレントゲンを撮っていた」
これは比喩。
・骨折した骨の断片が互いの位置関係に応じて電気的な場(電位分布)を作り出し
・その電場の形が "骨のどこがどうずれているか" を正確に反映している
つまり、骨自身が、骨折の状態を"電気的な像"として描き出しているということ。
レントゲン[X線写真]は骨の位置関係を可視化する技術だから、ベッカーはそれを比喩に使っている。
背景:なぜ "レントゲン"という比喩が成立するのか?
ベッカーが説明しているのは:
・神経由来の電流(A)
・骨基質の圧電効果による電流(B)
このAとBが逆極性で、電池のように働く。
その結果:
・骨折片の位置関係に応じて
・複雑な電場(電位分布)が形成される
この電場は、骨折の形・ずれ・角度をそのまま反映した"像"になっている。
だから、ベッカーはこう言う:「骨は自分の状態を自分で "映し出している"」
ベッカーの比喩はいつも大胆、ここは特に "生命が自分を観察している"という美しい発想が表現されている。
私がプローブ[探り針]や計測器に忙殺されている間、デイブは骨や血餅のサンプルを採取し、顕微鏡観察の準備を進めていた。最初の2時間は15分ごとに数匹のカエルを処置し、その後は2週間は毎日、3週目は1日おき、最後の3週間は週1回のペースで処置した。スライドの準備には数日かかった。
カエルの骨が治る通常の経過では、まず骨折後およそ2時間で血餅[血の塊]ができ、最初の1週間のあいだにそれが芽体へと発達していく。第2〜3週になると、それはゴムのように弾力のある線維性の仮骨へと変わり、3〜6週のあいだに骨化が進む。この最後の時期には、まず骨折端の近くに小さな"骨の島"が現れ、ついでそれらをつなぐ "骨の橋"ができはじめる。その後、骨折部全体が徐々に埋められ、整理され、骨髄腔や血管の通り道が整えられて、古い骨の両端がひとつにつながっていく。
骨折からほぼ一週間後の標本から、デイブは作業を始めた。この頃には仮骨ができ始めているはずだった。
「これはとんでもなく妙だ」と、最初のスライドの箱を持ってきたデイブが言った。
「骨膜に有糸分裂がまったく見えない。細胞が増えている様子も、移動している形跡もない」
一口メモ:デイブが言っているのは:
「骨膜に有糸分裂の像がまったく見えない」
→ 細胞が増えていない
→ 仮骨ができ始めるはずの時期なのに、おかしい
という驚き。これは後の"電気が細胞を呼び寄せる"という発見につながる伏線。
私たちは、何か間違ったことをしてしまったに違いないということで意見が一致した。この点について、プリチャードの研究は極めて決定的なものだった。彼は、骨膜細胞が分裂し、その隙間へと移動していく様子を写した写真さえ発表していた。私たちは、もしかしたら時期の異なる標本を見ていたのかもしれないと考えたが、骨癒合組織が形成され始めていることは、この目で確かめることができた。デイブは、凝固した血液以外にはあまり見られるものがないと予想していたにもかかわらず、最初の数日間の標本を調べに戻った。ほどなくして、デイブが研究室から私を呼びにきて、こう言った。
「もし赤血球が変化して、新しい骨をつくる細胞になると言ったら、どう思う?」
私は思わずため息[ああ….]をついた。
「馬鹿げている。そんなはずはない」
だが、それは正しかった。私たちは一緒にスライドの全シリーズを見直した。2時間目から、赤血球erythrocytes(赤血球red cells)が変化し始めた。
※ 日本語に訳すと赤血球という単語がなぜ二度も?と疑問に思われるかも知れません。"erythrocytes"は専門語、"red cells"は一般読者への配慮だと思います。
哺乳類を除くすべての脊椎動物では、赤血球に核がある。一方、哺乳類の赤血球は、発生の途中で核を捨ててしまう段階を経る。その結果、細胞はより小さくなり、より細い毛細血管を通れるようになり、ヘモグロビンを多く詰め込めるため、酸素と二酸化炭素をより効率よく運べる。核をもつ赤血球はより原始的とされているが、それらの核もピクノーシス[核の凝縮]を起こしており、縮んで不活性化している。ピクノーシスを起こした核のDNAは休眠状態で、こうした細胞は代謝活動をほとんど持たない。つまり、エネルギーとしてのブドウ糖も燃やさず、タンパク質合成も行わない。もし、脱分化して活動性を取り戻す細胞の候補を選ぶとしたら、これは最悪の選択だと言わざるをえない。
一口メモ:
・核が縮んで不活性化している赤血球は"最も活動性が低い細胞"
・そんな細胞が "骨形成細胞に変わる"なんてことは常識では絶対にありえない
だからこそ、この後の発見が "革命的"になる。この段落は、赤血球が "最も活動性の低い細胞"だと強調されている
私たちの標本シリーズでは、赤血球は発達の全段階を逆順に経た。まず、特徴的な扁平な楕円形を失い、球形になった。その膜は波状の輪郭を帯びた。3日目までに、細胞はアメーバ様となり、仮足を使って移動するようになった。同時に、核は膨張し、染色や光に対する反応の変化から判断して、DNAが再活性化された。これらの変化をより鮮明に観察するため、電子顕微鏡の使用を開始した。1週間の終わりには、かつての赤血球はミトコンドリアとリボソーム(タンパク質が合成される細胞小器官)を完全に備えるようになり、ヘモグロビンをすべて失っていた。3週間目には、それらは軟骨形成細胞へと変化し、まもなくさらに骨形成細胞へと発達した。
私はこの展開に満足していなかった。私たちが見た現象を、プリチャード、ボーデン、ルジカによる十分に立証された知見と、どう整合させればよいのだろうか?
私は、自分が調査していた半導体的な電気システムの証拠を期待していた。その概念は、すでに十分に奇異なものであり、私を科学の主流から遠ざけていた。もし電気的測定結果が、骨膜細胞の単純な変化と一致していれば、私は満足していただろう。それらと赤血球との違いは決定的なものだった。骨膜細胞は骨細胞にきわめて近い系統の前駆細胞だったが、血球はそれとはかけ離れた存在だった。遺伝子レベルで "職業再教育[大幅な作り替え]"なしに、それらが骨を形成することは到底あり得なかった。これらのウシガエルは、私たちを学界のドグマの壁に真正面からぶつけてきた。それが示していたのは、まったく無関係な細胞型へと変わる"化生[ある細胞が、まったく別の種類の細胞に変わる]"─すなわち、脱分化のあとに再分化が起こるという現象だった。しかもその過程は、カエルの体の中でも最も特殊化した細胞で起きており、骨折後およそ1時間、電場が最も強くなる時点でその変化が動き始めるように見えた。
一口メモ:ベッカーがここで強調しているのは
・骨膜細胞 → 骨細胞
→ これは"普通の進化"
・赤血球 → 骨形成細胞
→ これは"ありえない大転職"
→ 遺伝子レベルでの再教育が必要
→ だからこそ「化生(metaplasia)」という禁忌の領域
つまり、ベッカーの驚きは、科学的常識が完全にひっくり返る瞬間。
私たちの次の行動は、プリチャード博士に敬意を込めた手紙を送り、この矛盾した観察結果をどう解釈できるか尋ねることだった。彼は否定的な返答をしたが、私たちの問い合わせをボーデン博士に転送した。ボーデン博士は博士論文としてカエルを用いた実験を実際に行っていた人物だ。
ボーデンには、ひとつ思い当たる説明があった。彼は時間制限のある中で実験を行っており、期限までに終わらせるため、カエルの代謝を早めるべく、カエルを高温環境下に置いていた。実際、その温度はカエルを死に至らしめるまであと数度というところだった。
ボーデンは、参考文献に挙げていた二人の研究者も、私たちとほぼ同じような骨折治癒をカエルで観察していたと述べた。1920年代、H・ウルムバッハH. Wurmbachというドイツ人研究者が、博士論文のために同じテーマを扱い、血餅の中で奇妙な細胞変化をいくつか見つけ、その説明がつかないことに頭を悩ませていた。しかしウルムバッハは骨膜に有糸分裂も見つけており、脱分化を伴わないこちらの過程こそが治癒の本体だと考えた。10年後、別のドイツ人科学者 A・イデ=ロザスA. Ide-Rozasも血液細胞に同じ変化を見ていたが、彼はさらに大胆だった。この細胞変化こそがカエルの骨折治癒の主要な原動力であり、再生するサンショウウオの肢芽limb blastemaも、核をもつ赤血球から形成されると提案した。その後の実験結果は、肢芽に関するイデ=ロザスの考えと矛盾するように見え、彼の研究は信用を失い、無視されてしまった。それでもボーデンは、私たちによりいっそうの幸運が訪れるよう祈ってくれた。
※ blastema(芽体):再生のもとになる未分化細胞の集まりを指す一般的な用語。
limb blastema(肢芽)は、そのうち "肢(腕や脚)"を再生するときに形成される特定の芽体を指す専門用語。
ボーデンの手紙は、私たちの結果を理解するための枠組みを与えてくれた。哺乳類の赤血球には核がなく、変化を起こすメカニズムがないため、赤血球の脱分化によって骨が治癒するわけではないことは、すでに分かっていた。また、哺乳類は他の脊椎動物よりも骨膜が厚いため、哺乳類では骨膜細胞の分裂が治癒においてより大きな役割を果たしていると私たちは推論した。カエルは、どうやら両方の方法を利用できるようだが、高温時のみ骨膜細胞を活性化させるようだった。
脱分化のDIY
これで、私たちの結果が本物だと確信した。
私たちは同じ骨折実験を繰り返したが、今回は細胞が生きている間も観察を行った。骨折部位から組織サンプルを採取し、全米科学アカデミーのワークショップで私を強く感銘させたあの映像と同じような手法を用いて、タイムラプス映像を作成した。電気力がピークに達した直後の数時間以内に変化が始まることを確認した。
そこで私たちは、極めて重要となる実験を試みることにした。もし電気が本当に治癒を引き起こすのであれば、同じ電場を人工的に再現し、カエルの体外にある正常な血液細胞でも同様の変化を起こせるはずだ。もしこれがうまくいかなければ、私はおそらく過去7年間を"切手集め"─興味深い事実を積み重ねていたが、結局は取るに足らないことばかり─に費やしていたことになる
私が発見した磁場を生み出すのに必要な電流の量を計算してみた。その結果、1兆分の1アンペアから10億分の1アンペア(それぞれピコアンペアとナノアンペア)という、信じられないほど微小な値が導き出された。やはり何か間違いがあるに違いないと思った。
これほど微弱な電流で、私たちが目にしたような劇的な効果が生じるとは到底思えなかった。そこで、たとえ計算が正しかったとしても、電流を強くすれば単にプロセスが早まるだけだと考え、まずは50マイクロアンペアから始めることにした。これは、水が水素と酸素に分解される(電気分解)直前の電流レベルに相当する。
私は様々な形状のプラスチック製およびガラス製のチャンバーを設計し、数種類の電極を取り付けた。これらのチャンバー内に、生理食塩水に溶かした健康な赤血球を入れ、電流を流している間、顕微鏡で観察することにした。
実験は医療センターの向かいにある研究室で行った。そこには、チャンバーの底に沈殿する赤血球の大部分を観察するために必要な倒立顕微鏡が1台あった。フレデリック・ブラウンという名の若い技術者に、様々なチャンバー内で異なる電流レベルや電場形状の下、何時間もかけて細胞を観察するという長丁場の作業を任せた。1966年の夏に実験を開始した。フレッドはその秋に医学部に入学する予定だったので、私は2ヶ月あれば十分すぎるだろうと考えた! 彼は毎日1回、同じ条件でひとまとまりのカエルの血液サンプルをテストし、翌朝、その結果を私に報告することになっていた。
最初はうまくいかなかった。6時間電流を流しても、何も起こらなかった。細胞を感電死させずに電流を強めることはできなかったため、さらに長時間流すことにした。それでも何も起こらなかった。実際、チャンバーに一晩放置すると、細胞が死滅し始めた。電流を下げることにしたが、私が計算した途方もなく低い数値をまだ信じられなかったため、フレッドには毎日ほんの少しだけ電流を下げるよう指示した。あの2ヶ月間、彼と私は数多くの血球をじっと見つめ続けたが、どれも頑なに何の動きも見せなかった。最終的に、フレッドが出発する2日前、最初の実験装置で測定できる限界まで電流を下げ、私が計算した範囲内、つまり約5億分の1アンペアに収まるようにしてみた。その日の午前11時、彼は興奮した様子で私を呼び、私は急いで駆けつけた。
部屋を暗くし、顕微鏡の照明を点けると、血栓の場合と同じ細胞の変化が観察された。まず負極で、次に正極で、そして最終的にはチャンバー全体に広がっていった。4時間後には、チャンバー内のすべての血液細胞が核の活動を再開し、ヘモグロビンを失い、形態が完全に未分化なものとなっていた。
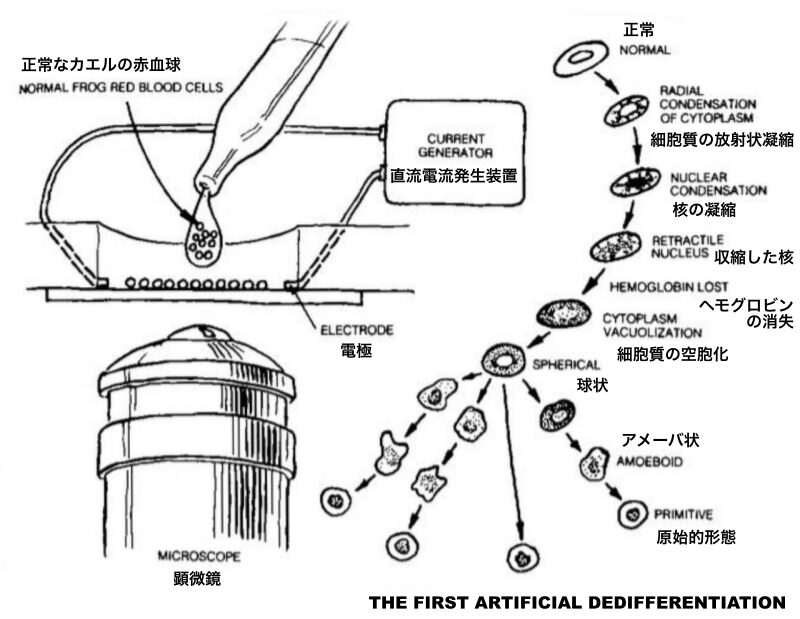
※ベッカーが初めて人為的に赤血球を脱分化させたときの観察
電気刺激が細胞を"原始状態"に戻すことができるというベッカーの核心仮説を裏づける図
私たちはこの実験を何度も繰り返し、効果が出る電流の上限と下限を探っていった。最適な電流の範囲は、およそ 200〜700ピコアンペアのあたりだった。ただし、"およそ"と言うのは、細胞の感受性が年齢や、カエルのホルモン状態、あるいは他の要因によって変わってしまうからだ*。
* カエルは、赤血球のストックの一部を少しずつ更新していくのではなく、冬眠から目覚める晩冬に、その年に必要な赤血球を一気にまとめて作り出す。そのため、年が進むにつれて赤血球は一様に年を取っていく。赤血球は古くなるほど電気への感受性が低くなる。だから、カエルが冬眠していない状態でも、冬になると骨折の治りが遅くなる理由はそこにあるのかもしれない。
赤血球がもっとも脱分化しやすいのは春で、とくにメスは産卵期に入るとオスよりさらに電気に敏感になる。その時期のメスの赤血球は、1ピコアンペア未満の電流でも脱分化してしまう。実際、私たちは、産卵期のメスから採った赤血球が、電流をまったく流していないチャンバーの中で完全に脱分化するのを見た。どうやら、プラスチック製のチャンバーとガラス製のカバーガラスのわずかな電荷差が生む、ごく微弱で測定不能な電流だけで十分だったらしい。
これは、人間が舌のような最も敏感な部位でもまったく感じないほどの、ごく微弱な電気刺激にすぎなかった。それでも細胞にとっては、すべての遺伝子を使える状態に解錠させるには十分だった。
効果が出るには、適切な細胞と適切な電流の両方が必要だった。白血球や皮膚細胞などではうまくいかず、カエルでは赤血球だけが標的細胞として働くようだった。同じ反応は、金魚、サンショウウオ、ヘビ、カメの血液細胞でも見られた。違いといえば、魚の赤血球はカエルより速く脱分化し、爬虫類の赤血球はよりゆっくりだったことくらいだ。どの赤血球でも、核の透明度と染色性が変化する段階が "後戻りできない点"だった。この変化は DNAの再活性化を示しているようで、その後は電流を切ってもプロセスが勝手に進んでいった。
これは大きな突破口だった。私たちは、これまで誰も気づいていなかったカエルの骨折治癒の仕組みをつかみ、しかも数年後には人間の治療にも役立つ可能性が高かった。哺乳類の代わりにカエルを使ったおかげで、私たちは脱分化に関するこれまでで最も有力な証拠―まさに"自家製[DIY]の方法"―にも偶然たどり着いた。もし哺乳類で骨折治癒を調べていたら、この発見にはまず到達できなかっただろう。というのも、骨膜細胞は脱分化しないし、骨髄細胞は実験が難しいからだ。その代わり、私たちは脱分化が起こる様子を収めたフィルムまで手に入れ、電子顕微鏡写真では、核の中で新しいリボソームが作られ、それが細胞質へ送り出されていく段階まで確認できた。さらに、脱分化のすべての段階─核内での活動から、リボソームやミトコンドリアの組み立てに至るまで─が、サンショウウオの肢芽に関する最新研究で見つかった変化と完全に一致していた。つまり私たちは、再生の第一段階の芽体を始動させる"電気的な共通因子"を見つけた。
遺伝子の鍵
この実験を終えた直後、私はニューヨーク科学アカデミーで開催された生物学における電磁気学に関する会議に招待された。これは要するにワンマンショーだった。著名な外科医であり、同アカデミーの要職にあるケネス・マクリーンは、長年にわたり患者に磁場を用いており、それが有効だと確信していた。彼は個人資産家であり、自身のオフィスに大型の電磁石を備えた研究室を設けていた。この会議は、彼の粘り強さの証だったが、彼の主張が正しいと学会が広く信じていたわけではなかった。そこで1967年2月、私たちの最近の研究成果を発表した。
私は、生命論的なニュアンスを帯びる「骨折治癒における電気の役割」については控えめに述べ、代わりに、試験管内で脱分化を誘導する私たちの手法に焦点を当てた。それだけで聴衆から多くの反論が飛び交ったが、そのほとんどは「到底信じられない」という類いのものだった。培養下で細胞が10日間も生存していたという事実にもかかわらず、単に細胞に感電させているだけだと主張する者もいた。
ただ一人、思慮深く建設的な批評をしてくれた聴衆がいた。彼は、私たちが見たものを見たという事実自体は受け入れてくれた。しかし同時に、ほぼあり得ないが一応考えられなくもない別の説明もある、と言った。とくに彼は、電流によって細胞がゆっくりと傷んで変性している可能性を、私たちは十分に排除できていないと指摘した。チャンバー内の細胞は、骨折部の血餅で撮影した細胞とよく似ていたものの、それを電気的に脱分化した治癒細胞とみなす私たちの考えは、当時の通説とかけ離れていたため、もっと直接的な証拠が必要だというのだった。これほど通説から大きく外れた主張では、見ただけでは証拠として十分ではなかった。
この率直な反応に刺激を受け、デイブと私はシラキュースに戻り、DNAに関する最新の知見を活用して、私たちの証拠をさらに検証する方法を計画した。数年前、ジェームズ・ワトソンとフランシス・クリックは、後に"遺伝学のセントラル・ドグマ"として知られるようになる説を提唱していた。簡単に言えば、それは、各分化した細胞内の活性DNAが、それ特有のパターンを転移RNAに刻印し、それがメッセンジャーRNAへと伝達するというものだった。この2番目のRNA分子は、細胞核の外へ出てリボソームへと移動し、そこで遺伝情報を翻訳して、その細胞をその細胞たらしめる特定のタンパク質を作り出す。
私たちは、脱分化中の細胞は直ちに分裂することはないため、遺伝子を複製することもないと推論した。したがって、その細胞に含まれるDNAの量は増加しないはずだ。しかし、細胞は全く新しい一連のタンパク質を合成することでその種類を変えたため、タンパク質の設計図 RNAの量は劇的に増加するはずだ。
放射性標識法と蛍光染色法を用いて調べたところ、確かに新しいDNAは存在しなかったが、RNAは劇的に増加していることがわかった。別の検査では、脱分化した細胞には、前駆細胞の赤血球の2倍もの種類のタンパク質が含まれていることがわかった。
最も決定的な実験は、フレッド・ブラウンの後任となり、後に解剖学の博士号を取得した学生、ダン・ハリントンが提案したものだ。ダンは、DNA-RNA-タンパク質系を阻害する既知の代謝阻害剤を用いて、脱分化を阻止できるかどうかを確認しようと提案した。そのような阻害剤の一つ、抗生物質 "ピューロマイシン"は、メッセンジャーRNAからリボソームへの情報伝達を遮断し、それによってタンパク質の合成を阻止する。
ダンは、プラスチック製のチャンバーをペアで設置することを提案した。各ペアのうち一方には、生理食塩水に溶かした血液細胞を入れ、以前と同様に電流を流す。もう一方のチャンバーには、同じカエルから採った細胞を入れ、同じ電流発生器につないで電流を流すが、溶液にはピューロマイシンを加えておく。これにより、実験装置は厳密に制御されることになる。もし電流が本当に新しい遺伝子を解錠しているのなら、ピューロマイシンは DNA のタンパク質合成指令を遮断して、脱分化を止めるはずだ。しかし、もし電流が単に細胞を変性させているだけなら、ピューロマイシンは何の影響も与えず、変化はそのまま進むはずだ。
私たちの結論は裏付けられた。ピューロマイシン溶液中の細胞は変化しなかった。次にダンは、ピューロマイシンを洗い流すために、これらの細胞を数回水換えすることを提案した。電流を流さなくても、細胞は即座に脱分化を起こした! どうやら、電流は抗生物質の存在にもかかわらず遺伝的変化を引き起こし、遺伝子は解錠されたままだったため、ピューロマイシンによる遮断が解除されるとすぐに、システムは依然として完璧に機能した。
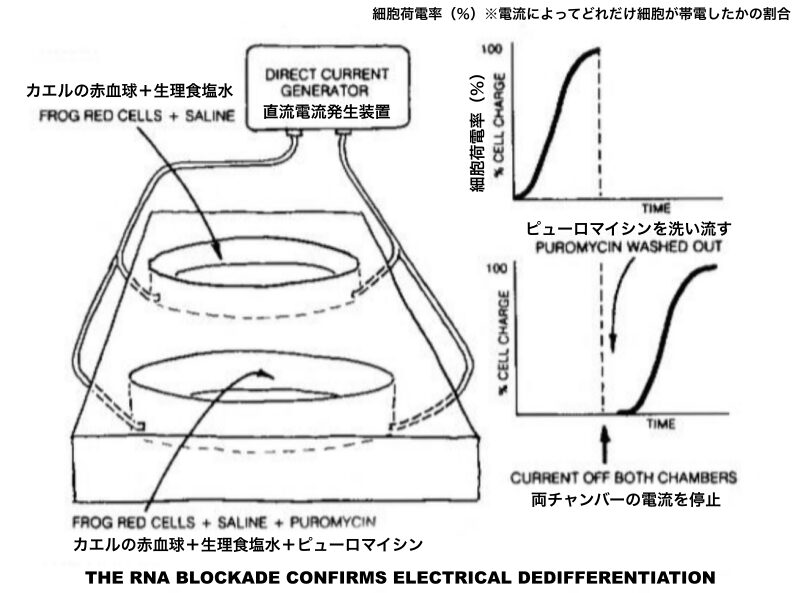
※ 図中、細胞荷電率(%)は、電流によってどれだけ細胞が帯電したかの割合
1970年初頭までに、私たちはカエルの骨折治癒における制御システムのほぼすべての詳細について確固たる証拠を得ており、その知見は哺乳類にも同様に適用できると考えられた。他のあらゆる損傷と同様に、骨折も損傷電流を発生させた。この場合、その電流は骨膜内およびその周辺の神経に由来する*。同時に、骨は、損傷を受けたアパタイト・コラーゲン基質内の残留応力により、圧電効果によって独自の電流を発生させた。これらの信号が組み合わさり、新しい骨を形成する細胞を刺激した。
* 骨膜(神経由来)電流の欠如は、対麻痺[脊髄損傷などにより両下肢に麻痺が生じる状態]患者やハンセン病患者の四肢において、骨折後にしばしば見られる制御不能で変形した骨の成長を説明する可能性がある。彼らの骨は依然として骨断端間に正の電位を生成しているが、神経損傷のため、通常は骨折部位を囲む負の骨膜電位によってバランスが取れていない。
標的細胞の種類を除けば、骨の修復はすべての脊椎動物において基本的に同じであり、血餅、芽体、仮骨、骨化という段階を経て進行するようだ。魚類、両生類、爬虫類、鳥類においては、血餅中の赤血球が電場、特に骨の断端にある正電位に反応して脱分化する。その後、それらは軟骨細胞として再分化し、さらに骨細胞へと変化していく。
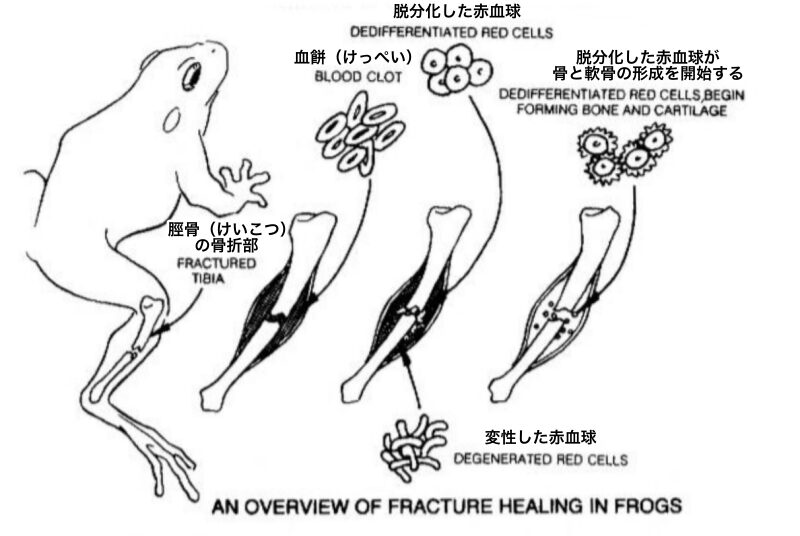
※ベッカーが強調する"赤血球の脱分化による再生"を視覚化
一部の動物では、骨膜細胞が損傷の電流に反応して骨折部のすき間へと移動し、さらに骨細胞へと分化した。このプロセスは、両生類では高温下でのみ利用可能なようだったが、哺乳類では主要な方法であり、その厚い骨膜が赤血球の核の欠如を補っていた。この時点で、ヒトの骨治癒における骨髄成分には、少なくともまだ核を含む未熟な赤血球、そしておそらく他の細胞タイプの脱分化が関与していることは、ほぼ確実となっていた。
電気的な力が、抑制されていた遺伝子の鍵を開けた。ただし、その"鍵"の正体だけは、まだ欠けている部分だった。電流は細胞膜と細胞質に隔てられているため、核に直接作用することはできない。したがって、電流の主な作用点は細胞膜のはずだった。細胞膜そのものには電荷があり、その電荷は細胞の種類ごとに異なる特有の分子パターンとして存在していると考えられていた。
私たちは、細胞膜が "抑制解除因子"─核へ移動して遺伝子をオンにする分子─を放出するのではないかと仮定した。最近のRNA構造に関する知見を踏まえ、この抑制解除因子は、成熟した赤血球の核が萎縮して機能を停止した後も細胞内に残っている安定型のメッセンジャーRNAではないかと考えた。RNA分子は、折りたたまれて電子結合で固定されていると、長期間安定して存在できる。もしそのような折りたたまれたRNAが細胞膜に蓄えられているなら、微小電流がその結合をほどき、分子を展開させることができるだろう。この仮説は、まだ検証されていない。
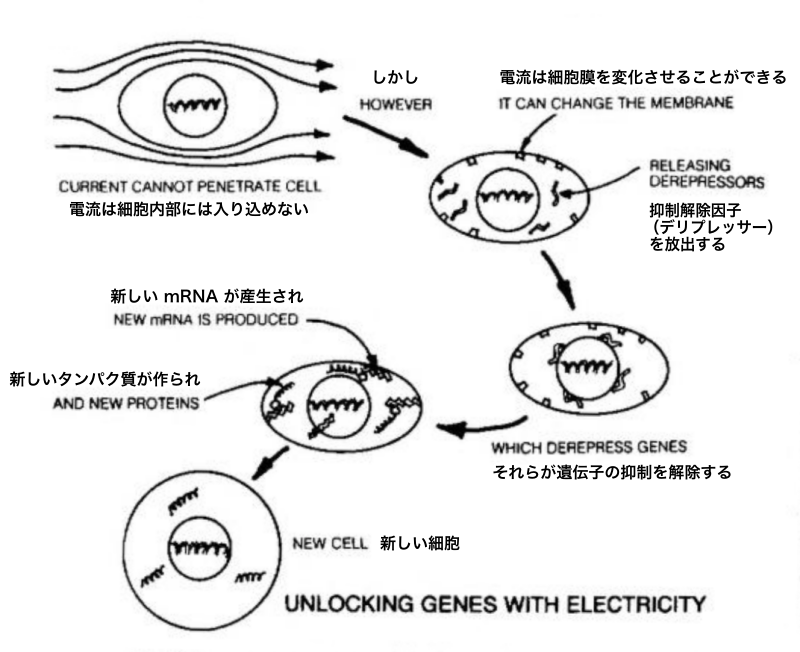
※電気刺激が細胞膜に作用して遺伝子発現を解放するというベッカーの核心モデル
骨折の治癒は、ごく単純な負のフィードバック機構で終息していく。骨折部のすき間が新しい基質で満たされるにつれ、骨は周囲の筋肉が慎重に使われることで生じる力のバランスに合わせて材料を再配分し、ウォルフの法則に従って形を整えていく。周囲組織の修復が進むと、骨膜の損傷電流は弱まり、やがて消える。その結果、電場は正常に戻り、治癒に関わる細胞活動は停止する。
この一連の実験を終えたとき、私はこれこそ生涯で最も重要な仕事だと確信し、短報ではなく、主要論文として発表するつもりだった。幸運も味方した。この二年間、いくつかの講演の場でユリスト博士とじっくり話す機会があり、彼は私たちの成果に強い関心を示してくれた。しかも彼は、整形外科の主要誌のひとつ「臨床整形外科と関連研究Clinical Orthopedics and Related Research」の編集長でもあった。そこで私はこの雑誌に投稿し、編集委員会は原稿を一切削らずに掲載してくれた。1965年の骨治癒ワークショップでのプリチャード博士の言葉を題辞[冒頭の引用文]として添えられたことも嬉しかった。今でも、私にとって最も満足のいく論文だ。
豆知識:論文誌にはふつう、いくつかの投稿形式がある
・Original Article(原著論文)
・Review(総説)
・Case Report(症例報告)
・Short Communication / Short Note(短報)
・Letter(短い報告・意見)
このうち Short Note は正式に存在するカテゴリーで、新しい発見だけど、データ量が少ない、速報性が高い、本文が短い(1〜3ページ)という形式。
治癒過程の制御システムがこれほど詳細に解明されたのは、これが初めてのことだった。3年前にデイブと私がニューヨーク科学アカデミーで発表した、決定的な証拠とは言い難い報告を除けば、これは脱分化と化生[ある細胞が、まったく別の種類の細胞に変わる]に関する、真に反論の余地のない最初の証拠でもあった。
もちろん、これらは決して新しい考えではなかった。過去40年間、芽体形成の最も単純な説明として脱分化がしばしば提唱され、その証拠も数多く蓄積されていた。エリザベス・ヘイは、完全には脱分化しきっておらず、まだ筋線維の一部を残したままの芽体細胞の電子顕微鏡写真さえ発表していた。それにもかかわらず、この考えは、助成金審査委員会や大学で影響力を持つ生物学者たちの大半によって退けられていた。
しかし今では、脱分化は"禁句"ではなくなった。その理由のひとつは、デイブと私が誰でも再現できる人工的な脱分化法を考案したことにある。ニューヨークでアンディ・バセットと仕事をしていた電気化学者のアート・ピラArthur Pillaが、最初に私たちの方法を確認してくれた。この苦労して勝ち取った知識の前進に、大きく貢献できたことを私は誇りに思っている。
さらに重要なのは、この研究が私の仕事の中で初めて、患者の治療─骨折治癒の電気刺激法(第8章参照)に直接つながったという点だった。同時に、私たちの結果はもうひとつ大きな疑問を生んだ。
見つけた電流を人工的に使えば、ほかの種類の再生も刺激できるのではないか?
そこで私たちは、四肢の再生を人間に一歩近づけるために、まずはラットでそれをもたらすことができるかどうか、試してみることにした。
第7章 哺乳類への朗報
スティーヴン・D・スミスは、再生能力のない動物の四肢に電気を加え、人工的に再生をもたらした最初の研究者だった。1967年、チュレーン大学でのメリル・ローズのもとでの研修を終え、ケンタッキー大学で独立したスミスは、成体カエルの脚の切断端に小さな電池を埋め込んだ。私は彼の研究を食い入るように追い、ローズの塩、ポレジャエフの針刺激法、シンガーの神経付け替えと同程度の部分的再生が得られたと聞いて、心から興奮した。私に影響を与えた数々の実験の中でも、これほど励まされたものはほかにない。
十分に小さく、出力の弱い電池を用いるため、スミスはガルヴァーニとボルタの単純な技術に立ち返った。彼は短い銀線を同じ長さの白金線にはんだ付けし、はんだ付け箇所をシリコン絶縁体で覆った。周囲の組織と反応してイオンを放出し、偽の効果[余計な影響]を生まないようにするために、彼はこの二つの金属を選んだ。カエルのわずかに塩分を含む体液に浸すと、このバイメタル装置は微弱な電流を発生させ、その電圧は銀側の端で正、白金側の端で負となった。
一口メモ:この段落の技術的ポイント
銀(Ag)と白金(Pt)
→ 生体内で最も安定で、イオンを出しにくい組み合わせ
ガルヴァーニ/ボルタ型の単純な電池
→ 異種金属を接触させるだけで微小電流が生まれる
電圧の極性
→ 銀端がプラス、白金端がマイナス
生体内の微弱な塩分(体液)
→ 電解質として働き、電池が成立する
スミスは、最小限の化学反応で "純粋な電流だけ"を生体に与えようとした。
私たちの赤血球の研究はまだ発表されていなかったので、この電池が生み出す電流が、芽体形成に有効な電流の範囲にたまたま近かったのは、まったくの幸運だった。スミスは後にこう書いている。
「すべての条件を事前に計算しつくして、自分が何をしているか完全に理解していたと言えればよかったが、実際にはそうではなかった。科学の歴史でしばしば起きてきたように、私は偶然、正しい手順に行き当たった」
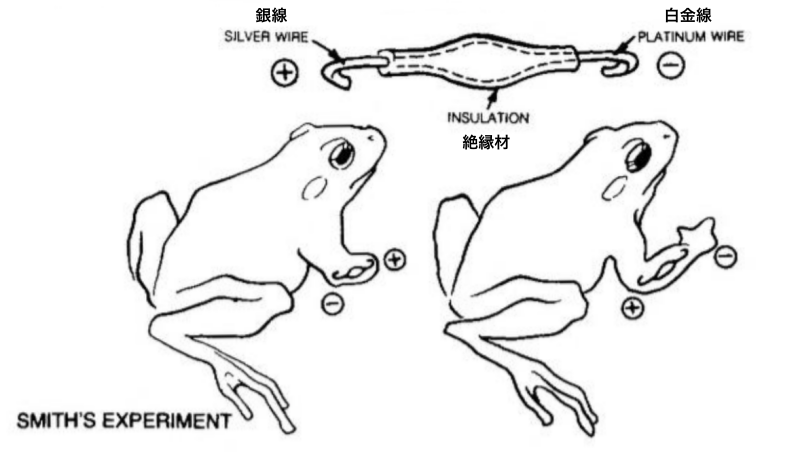
スミスは、電極のワイヤーを骨の残端[切断後に残っている骨の部分]に沿って埋め込み、その片方の端を曲げて骨髄腔の中に入れた。切断面に陽極の銀の電極が置かれた四肢では再生は起こらず、場合によっては組織が崩壊してしまった。しかし陰極の白金の端では再生が始まり、新しく伸びた四肢はどれも装置からほぼ同じ距離で成長が止まった。これは、もし電池が成長に合わせて先端へ移動できていれば[再生が陰極の近くでしか起こらないため、四肢が伸びるにつれて電池が "取り残されてしまった"ことを示す]、再生は完全に達成されていた可能性がある。1974年、スミスはまさにそれができる装置を作り、完全な再生を実現した。
一口メモ:
"bone remnant"(骨の残端)は、断端の中でも"骨の部分だけ"を指す言葉。
"marrow cavity"(骨髄腔)は、骨の中心の空洞で、血液細胞のふるさと。
一口メモ:ここでベッカーが言っているのは「再生して伸びていく四肢の"先端"に、陰極がついてこられなかった」ということ。
つまり、こういう状況:
・再生は 陰極(白金)の近くでしか起こらない
・でも電池の端子は固定されている
・四肢が伸びると、陰極はどんどん"後ろに置いていかれる"
・だから、再生も途中で止まってしまう
スミスの成功にもかかわらず、彼の方法が哺乳類に通用するとは当時はとても思えなかった。最近、生まれたばかりのオポッサム[北米および南米産の有袋類、ネズミに似た顔を持ち、口先が長く尖っている]の後肢に再生が見られるという報告があったが、有袋類は極端に未熟な状態で生まれ、母親の袋の中で発育して "第二の誕生"を迎えるため、これは単に胚の再生が続いていただけだろうと私たちは考えた。胎児の組織は、完全に分化しきる前ならある程度の再生能力をもっていることが知られていた。リチャード・ゴスは、シカやヘラジカの角が毎年再生するのは本物の複数の組織に関連する再生だと示したが、この離れ業[哺乳類としては異常に高度な再生能力]はあまりに特殊で、他の哺乳類や他の部位の再生に希望を持たせるには至らなかった。
多くの研究者は、哺乳類では脳化[脳への集中化、神経系の資源が脳に集中していく進化的傾向]が両生類よりはるかに進んでいるため、こうした試みはすべて失敗に終わると考えていた。すべての脊椎動物において、神経組織とその他の組織の比率はほぼ同じだと知られていたが、哺乳類では限られた神経供給の大部分が、ますます複雑化する脳へと注がれていた。その結果、シンガーが最近の研究で示したように、ラットの脚では、サンショウウオの脚に比べて神経の割合が80%も少なくなっていた。これは正常な再生に必要な臨界量を大きく下回るものであり、私たちは人工的にその差を埋めることは不可能かもしれないと考えていた。
たとえ適切な電気刺激を与えられたとしても、それに反応できる細胞が存在するかどうかは確信が持てなかった。哺乳類の赤血球には核がないため、脱分化することはできない。カエルの骨癒合に関する私たちの研究に基づき、骨髄内の未熟な赤血球が代役を果たすのではないかと推測したが、おそらくそれらは骨折の治癒のためにのみ脱分化するようにプログラムされていたのかもしれない。たとえ外部からの電流に反応するとしても、再生に必要なだけの未熟赤血球が骨髄内に十分存在するのかどうか、私たちは確信が持てなかった。
そこには、複雑さという問題もあった。多くの再生研究者は、哺乳類の組織はあまりにも特殊化し複雑になりすぎて、もはや本来の制御系が扱いきれなくなっていると考えていた。必要な部品を完全に記述するだけの情報量を、その制御系が処理できないのかもしれない。もしそうなら、芽体はできても、再生の設計図が届かず、何を作ればいいのか分からないまま動けなくなる。
一口メモ:ベッカーの比喩はこういうイメージ
芽体(blastema)は "再生の設計図"を必要とする。でも哺乳類では組織が複雑すぎて制御系(再生プログラム)が処理しきれない。すると芽体は、"次に何を作ればいいか分からない状態"になる。結果として、ただそこに存在するだけで、形づくりが進まない。つまり、再生の指示が来ないので、芽体が停止したままになる。
ラットの脚を用いた最初の一歩
スミスが使用した銀・白金接合を試験したところ、カエルを用いた実験の結果、理想的な脱分化を行うには電流が数倍も大きすぎることが分かった。チャーリーのもう一人の大学院生ジョー・スパダロは、二つの金属の間に炭素抵抗器を挿入することを提案し、それによって様々な電流レベルのデバイスを得ることができた。
1971年、ジョーと私は35匹のラットの右前脚を切断した。切断は肘から十分に離れた前脚上部で行い、先端にはとっくに成長が止まった骨幹のみが残るようにした。ホルモンによる変動を可能な限り排除するため、すべてオスを使用した。対照群として、切断端に装置を装着しない群、単一の金属で作られた装置を装着する群、あるいは銀のプラス極が切断端に向くようにした装置を装着する群を設けた。実際の試験は22匹のラットで行い、負極のプラチナ電極を傷口に当てるようにして電池を埋め込んだ。外側の電極は骨髄腔に収め、内側の電極は肩の皮膚に縫合した。
結果はすぐに得られた。3日後、対照群の切断端は癒合し始め、電流が最も高い組み合わせの場合には、切断線の少し後ろで組織が壊死し始めていた。しかし、1ナノアンペアを供給する中電流の装置を用いた実験群の脚は、良好な状態を保っていた。1週間後には、ほぼすべての個体に整った芽体が形成され、四肢全体を再生する準備が整っているように見えた。
ラットでは治癒が非常に速く、また最初の試験のために一様なサンプルが必要だったため、この時点で対照群のすべてと試験個体の大部分を犠牲にしたが、数匹だけは1ヶ月間取っておいた。治癒した四肢全体を切り取り、固定、染色し、顕微鏡観察用に切片を作成した。
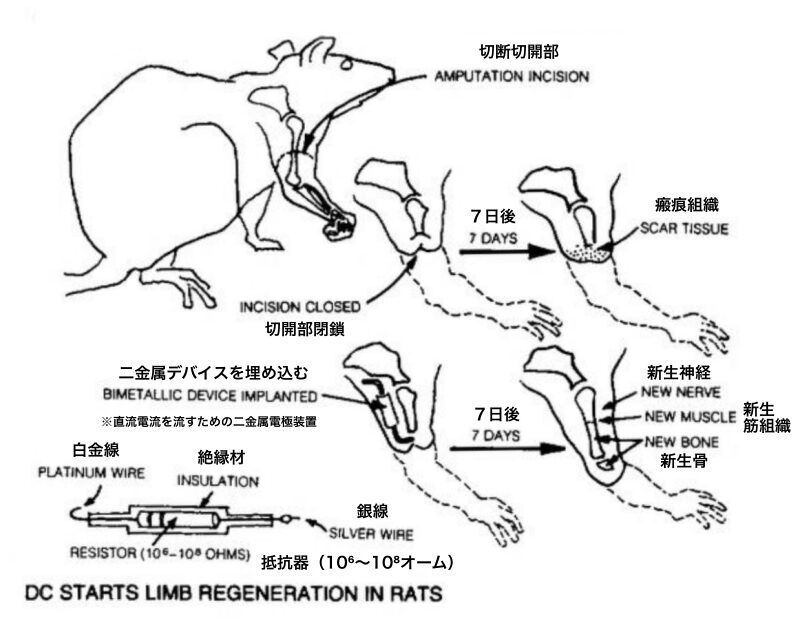
最初の標本群を観察した時のことは、決して忘れることはないだろう。切断された上腕骨の端から、骨の軸が再生して伸びていた。元の骨を完成させるのにちょうどよい長さのところには、典型的な横断状の軟骨性成長板があり、その複雑な解剖学的構造は完全に整っていた。その先には、四肢の骨の両端にある関節を形成する突起に見事な骨端が見えた。骨幹に沿って、新しく形成されつつある筋肉、血管、神経があった。少なくとも10種類もの細胞が芽体から分化しており、私たちは哺乳類において、ローズ、ポレジャエフ、シンガー、スミスがカエルで行ったのと同程度の再生に成功した。
一口メモ:なぜ "growth plate"が重要なのか
成長板(骨端線)は、骨の長さを伸ばすための"成長のエンジン"。再生が起きるとき、まずここが形成される。両生類では普通だが、哺乳類で現れるのは異例中の異例。つまり、ベッカーが見たのは、哺乳類で "完全な骨再生"が起きている証拠。この章は、ベッカーの研究人生の中でも最も劇的な瞬間のひとつ。
他の個体の標本スライドは、さらにいっそうアッと言わせるものだった。ある断端では、肘関節が完全に形成されたその先に、前腕の2本の骨の前駆体と思われる、軟骨性の形成物が二つ見られた。再生した組織はすべて電極に向かって曲がっており、ある標本では上腕骨の下部が、元の骨幹の延長としてではなく、その横に形成されていたが、それ以外の構造は極めて正常だった。
一口メモ:
切断された前腕の断端に、橈骨と尺骨の"前駆体"となる軟骨の塊が二つできていた。つまり、再生が "骨の設計図"の段階から始まっているという驚き。"再生の初期段階で軟骨がまず現れる"という生物学的事実
一つの例外を除き、1週間以上経過したスライドはそれほど興奮を誘うものではなかった。時間が経つにつれて、組織化が進まなくなっているように見えた。これらの古い芽体のひとつの基部側(背後)に、ほとんど形を成していない骨の"影"のような部分があり、その先に5本の指のような形をした軟骨が見つかった─この肢は手を作り始めようとしていた。
しかし、通例、電流には一定の強度だけでなく、一定の持続時間も必要のように見えた。これは、当時研究室を訪れ、最後にピアノを弾くネズミの"前後比較写真"を撮りたいと望んでいた「ライフ」誌のカメラマンにとっても、私たちにとっても失望すべきことだったが、それでも私たちは非常に満足していた。芽体は常に電極の周囲に形成され、再分化は組織化された組織へと進行したため、電流が単なる異常な増殖ではなく、真の再生を刺激したことが分かった。
哺乳類には、失われた部位を補うために遺伝情報の指令を秩序立てて読み出す能力が依然として残されていた。私たちは単に、このプロセス全体の電気的要件をより正確に解明し、適切な時に適切な場所に適切な電流を供給する装置を作ればよいだけだった。
結果を発表した際、必要な慎重な科学の専門用語で興奮を隠すのは難しかった。私たちは、ごく微弱な直流電流で、部分的だが真の再生を活性化させたこと、そして骨髄細胞が芽体の源のように見えたと記した。この主張は十分に慎重なものだと私は考えた。ジョーと私は、他の要因についてはまだ研究が必要だと注意を促した。最も重要な点として、私たちは次のように警告しておいた。これほど微小な力がこれほど容易に成長を誘発できるのなら、その力は極めて強力に違いない。したがって、人間に対して日常的に使用する前に、その力を徹底的に解明しておくべきだ。さもなければ、望ましくない増殖─すなわち腫瘍を引き起こす恐れがある。
私は、科学的な妥当性の範囲内で、再生の恩恵を人間にもたらすための大規模な研究推進に向けた力強い呼びかけを行ったと感じていた。しかし、それはささやきに過ぎなかったのだろう。カエルのいる池に羽が舞い落ちるような、そんな反響すら引き起こさなかった。
ブルックリンVA病院の歯科外科医であり、私の長年親交のある友人フィリップ・パーソンは、ニューヨーク医学アカデミーで私たちの研究結果を発表するよう私に依頼した。しかし、アカデミーはこれを許可する前に、二人の専門家が研究室を訪れ、実際のデータを確認しなければならないと求めた。その一人がマーク・シンガーで、彼は私たちが実際にラットで再生を起こしたことに熱心に同意した。もう一人の男は完全に否定的な態度だったが、彼は再生の専門家ではなかったため、アカデミーは私に講演を許可した。
会議で論文を読み上げた時、シンガーは熱意を示した数少ない出席者の一人だった。聴衆のほとんどは反応が薄く、コメントや批判もほとんどなかった。こうした人々にとって、電気による成長制御は依然として生気論的に不可能なことであり、彼らは脱分化について議論する気はないようだった。シンガーと共に私たちの研究室を訪れた男は、新たな成長の量が少ないと不満を漏らした。フィルは、特にこれほど短期間においては、量ではなく新しい組織の質が重要だと指摘した。神経の重要性を確信していたシンガーは、電流が直接、脱分化を引き起こしているのではなく、神経を刺激しているのではないかと考えたが、それでもこの実験は大きな前進だと考えていた。けれども、この実験が再び試みられたのは7年後、フィル・パーソン自身がその課題を引き受けたときだった。彼、そして後にスティーブ・スミスが、さらに良い結果をもって私たちの発見を裏付けた。
その間、文献の奥深くに埋もれていた報告から、他の研究者たちがすでに哺乳類におけるある程度の再生を観察していたことが分かった。1934年、ストレスの影響に関する著名な研究者ハンス・セリエは、生後2~5日のラットにおいて、四肢が自発的に部分的に再生することを発見した。5年後、ハーバード大学のルドルフ・F・ヌンネマッハーがセリエの観察結果を確認した。しかし、ヌンネマッハーはこの成長を骨端線[骨端板]の遺残[残ってしまったもの]によるものだとした。彼は、成長板の細胞が、単に若い個体において通常通り成長し続けただけかもしれないと考えた。これに対しセリエは、再生による成長だと確実に証明するため、骨端板をすべて含めるよう四肢を十分に高い位置で切断したことを明確に指摘して反論した。
豆知識:骨端線[骨端板]、成長板とは?
① 成長板(growth plate)=軟骨でできた"成長のエンジン"
・長骨(上腕骨・大腿骨など)の骨の長さを伸ばす場所
・軟骨細胞が増殖 → 石灰化 → 骨化 という流れで骨が伸びる
・子ども・若い動物に存在する
・X線では黒く(透亮像)見える
② 骨端線(epiphyseal line / epiphyseal plate)=成長板が "閉じた後"の痕跡
・成長が終わると、成長板の軟骨がすべて骨に置き換わる
・その結果できるのが骨端線(骨端板)
・つまり 成長板の"遺残痕"
・X線では白い線として見える
その関係を一言でまとめると
成長板(軟骨) → 成長が終わると → 骨端線(骨の線)になる
つまり:
・成長板は "機能している状態"
・骨端線は "役目を終えた後の痕跡"
こうしてジョーと私は、実際にはラットの再生能力の年齢限界を単に引き延ばしたに過ぎないことを突き止めた。実際、2年後、フィル・パーソンは、私たちが使用した若年成体ラットでさえ時折再生が見られることを示した。これは、対照群の個体数匹において私たちを困惑させていた事実だった。つまり正確に言えば、私たちの電極は、げっ歯類において加齢とともに通常は衰えるこのプロセスの効率を、一時的ではあるが劇的に高めた。とはいえ、哺乳類でそれが行われたのはこれが初めてのことだった。
幼少期の能力、大人の再生可能性
指先の切断─車のドア、芝刈り機、扇風機などによる─は、子供の怪我の中で最も一般的なものの一つだ。標準的な治療法は、露出した骨の表面を滑らかにし、皮膚を縫合する[縫い合わせる]ことだ。あるいは、指が回収され、切断面がきれいであれば、顕微鏡下手術によって再接合を試みる。悲しい現実だが、最も入念な手術であっても、結果は決して理想的とは言えない。爪は通常、変形していたり欠けていたりし、指は短すぎてしばしば痛みを伴い、触覚が低下しているか、あるいは全くない。
1970年代初頭、英国シェフィールド小児病院の救急外来で、このような怪我を負ったある少年が、事務上の手違いの恩恵を受けた。担当医は傷の手当てを行ったが、通常行われるはずの外科医への縫合依頼は行われなかった。数日後にこのミスに気づいた外科医シンシア・イリングワースは、指先が再生していることに気づいた! 彼女はただ、自然の成り行きを見守っただけだ。
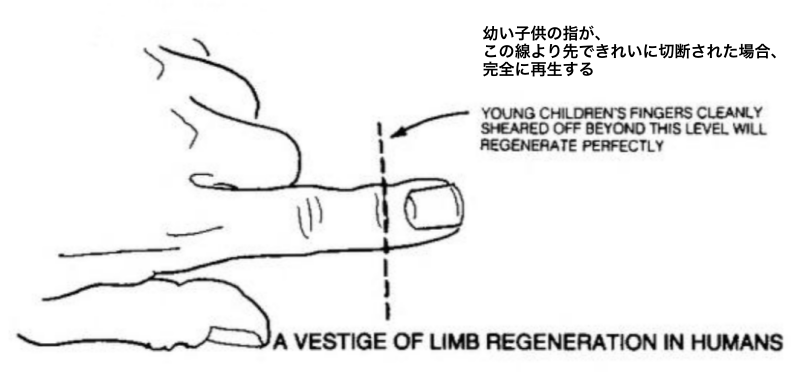
イリングワースは、このような "neglect 治療しないで放置する[放置療法]" 状態の他の子供たちの治療を始め、1974年までに数百件の指先の再生例を記録した。そのすべてが11歳以下の子供たちだった。他の臨床研究でも、幼い子どもの指が、最も外側の関節の最も外側のしわ[関節のしわ]より先で、きれいに切断された場合には、約3か月で必ず完全に再生することが確認されている。この"しわ"は鋭い境界線のようで、完全再生とまったく再生しない場合の間に中間領域は存在しないようだ。
ニューヨークのマウント・サイナイ病院のマイケル・ブライヒャーのような小児外科医の中には、この手順が絶対に効果があると確信して、わずかな肉片でかろうじてつながっているだけの指先を、あえて切断してしまう者もいる。完全に切断されて失われた指先は完全に元通りに再生するが、つながったまま損傷しただけの指は、断端のまま、あるいはひどい瘢痕を残して治癒する。
一口メモ:なぜ違いが生まれるのか?(ベッカーの核心)
・完全切断 → blastema(芽体)が形成される → 再生が起こる
・不完全切断 → blastema が形成されない → 再生しない
という 再生のスイッチの ON/OFF の違い。
だから、外科医があえて:“hanging by a bit of flesh”(皮膚でかろうじてつながっている)なら、きれいに切断してしまうほうが再生するという判断をする。
指先の再生は、真の多組織再生だ。芽体は骨、軟骨、腱、血管、皮膚、爪、キューティクル、指紋、運動神経、そして皮膚にある半ダースほどの特殊化した感覚神経終末へと再分化する。サンショウウオの四肢再生と同様、この過程は、通常の外科処置のように皮膚弁[血流を保ったまま皮膚と皮下組織を欠損部に移動させて再建する形成外科手技]で傷口を覆ってしまうと起こらない。イリングワースとその同僚のアンソニー・バーカーはその後、切断面から流出する負の電流を測定した。
残念ながら、この自然再生法が受け入れられているのはごく一部の病院に限られている。ブライヒャーは、科学的証拠に対する同僚たちの抵抗を嘆いている。
「研修プログラムを終えたばかりの若い研修医にこの話をすると、まるで頭がおかしいかのように見られる。院内の症例検討会や他の医療機関で説明しても、ナンセンスだと言われる」。
その代わりに、ほとんどの外科医は、派手で非常に高価なわりに効果の低いマイクロサージェリー[顕微鏡下手術]や、単純な縫合によって短縮した指にしてしまう従来の方法に固執している。
この発見と私たちの独自の研究は、少なくとも若い哺乳類においては、ある程度の自己再生の可能性が明らかに十分にあることを示していた。しかし、それを最も必要としている人々─つまり、身体の一部が損傷したり機能低下したりしやすい私たち高齢者はどうなのか? その答えは数年後、思いがけない形で得られた。それは、元の計画にかたくなに執着する無益さを示すものだった。
科学者は、現れた予期せぬ道を自由に進まなければならない。
私は常に、学生であれベテランの研究者であれ、共同研究とは無関係な独自のプロジェクトに取り組むことを、協力者一人一人に求めていた。1979年、ジェームズ・カレンという名の若い助手(現在はシラキュースVA病院の解剖学博士研究員)が、ラットの骨髄に神経を移植したらどうなるかを研究したいと提案してきた。ジムは、神経が骨髄腔内で新しい骨の形成を誘導するはずだと考えていた。そのアイデアは理にかなっているように思えたし、その技術は当時私たちが開発していた電気式骨治癒装置を補完する可能性があると考えたため、私は彼に研究を進めるよう勧めた。
ジムはすぐに技術的な問題に直面した。ラットの後肢から坐骨神経を摘出すること自体は容易だったが、大腿骨に開けた穴を通して骨髄腔に神経を挿入するのは、しなびたスパゲッティの一本を鍵穴に通そうとするようなものだった。そこで彼は、大腿骨に二つの穴を開け、外側の穴からワイヤー縫合糸を通し、大腿骨を伝って股関節に近い方の穴から出す方法を採用した。次に、そのワイヤーを神経に巻き付け、縫合糸を使って骨髄腔内に引き込んだ。しかし、これを何度か繰り返した後、ジムはもっと良い方法があるはずだと思った。そこで彼は、ラットの後肢を股関節と膝の中間地点で切断することにした。そうすれば、股関節のすぐ下の骨髄腔に穴を開け、そこに縫合糸を通し、神経を骨髄腔に沿って引き下げて、残った骨の端から外に出すことができる。この方法ははるかに簡単で、神経と骨の接続も良好だったため、ジムはこの方法で何匹も処置してみると、神経に困った傾向があることがわかった。神経が大腿骨から引き戻されてしまう。切断されてもネズミたちはひるまず、断端[切断して残った脚の部分]を活発に動かしたため、神経が引っ込んでしまった。
神経が所定の位置に留まっていたごく少数の個体では、骨髄腔内に興味深い骨の形成が見られた。神経を固定し、他の個体でも同様の結果が得られるか確認するため、ジムは神経を皮膚に縫合し、その皮膚で切断端を縫合して閉じた。縫合により神経は確かに所定の位置に固定されたが、この処置を受けた一匹のラットからは、まったく予測していない、そして興味深い結果が得られた。大腿骨の欠損部分が部分的に再生した。これだけでも十分に驚きだったが、いちばんびっくりしたのは、ジムが使ったのは予備として残っていた生後6か月ほどの余剰ラット[実験に適した若齢ではなく、余っていた成体ラット]だった。これらはすでに成体で、哺乳類が骨折の治癒を除いて再生能力を失うとされる年齢に達していた。
一体何が起きたのだろうか?
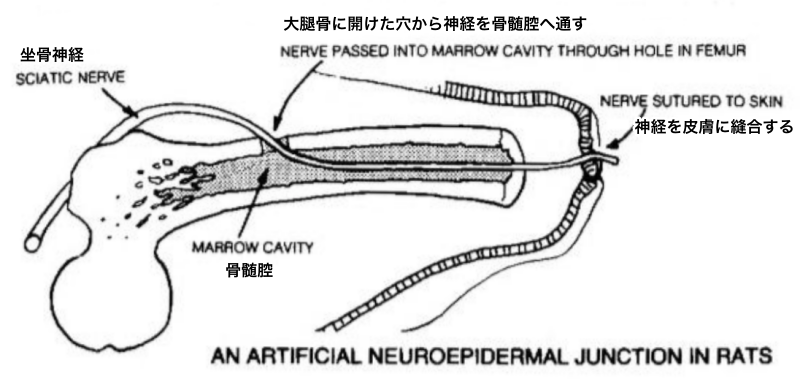
詳しく調べてみると、神経を皮膚に縫い付けた際に皮膚に小さな穴が開き、その部分で神経が表皮と接触したことがわかった。サンショウウオの四肢再生には神経─表皮接合部が必須だが、この幸運な一匹では、手術によって両組織が接近した結果、その接合部が自然に形成されたように見えた。
そこで実験方針を変更し、他のラットに対しては、真皮を削り取った上で坐骨神経と表皮を接合する手術を行った。さまざまな年齢の個体を用いた。その結果は私たちの予想を上回るものだった。年老いたラットでさえ、大腿骨と周囲の組織の大部分を再生した。
これは、神経─表皮接合部がなぜそれほど重要なのかを解明する、またとない機会となった。私たちは、ある一群の個体に対し、以前と全く同じ方法で外科的な神経─表皮接合部を形成した。第2群についても同様の方法で準備したが、神経を骨の端に縫合する際、穴から1ミリメートル離れた位置に縫い合わせ、表皮とは接触させないようにした。第1群では再生が確認されたが、第2群では成長は見られず、ラットにおける通常の治癒過程が観察された。しかし、重要な発見は、切断端に対して毎日行った電気的測定から得られた。神経─表皮接合部が形成された個体では、私がサンショウウオで発見したものと同じ曲線を描く電位が確認された。電圧は約10倍高かったが、そのパターンは全く同じだった。神経─表皮接合部が形成されなかった個体では、電位は、再生しないカエルと同じ曲線を描いていた。
私たちは、再生を開始させる特定の電気的活動が、四肢内の単なる神経の塊ではなく、神経─表皮接合部によって生み出されていることを発見した。直流制御システムが神経内に存在するという私の当初の説は、表皮の電気的特性も包含するように拡張されなければならなくなった。神経線維は、プラグがソケットに差し込まれるように表皮細胞と結合し、脱分化電流に必要な正確な回路を完成させていた。さらに、神経─表皮接合部は切断端のすぐ上に位置していたため、成長先端というまさに必要な場所で、絶えず芽体細胞を生成していた。したがって、この発見は極めて重要だった。なぜなら、電流こそが再生プロセスを開始する主要な刺激であり、それが哺乳類においても機能し得ることを疑いようなく証明したからだ。
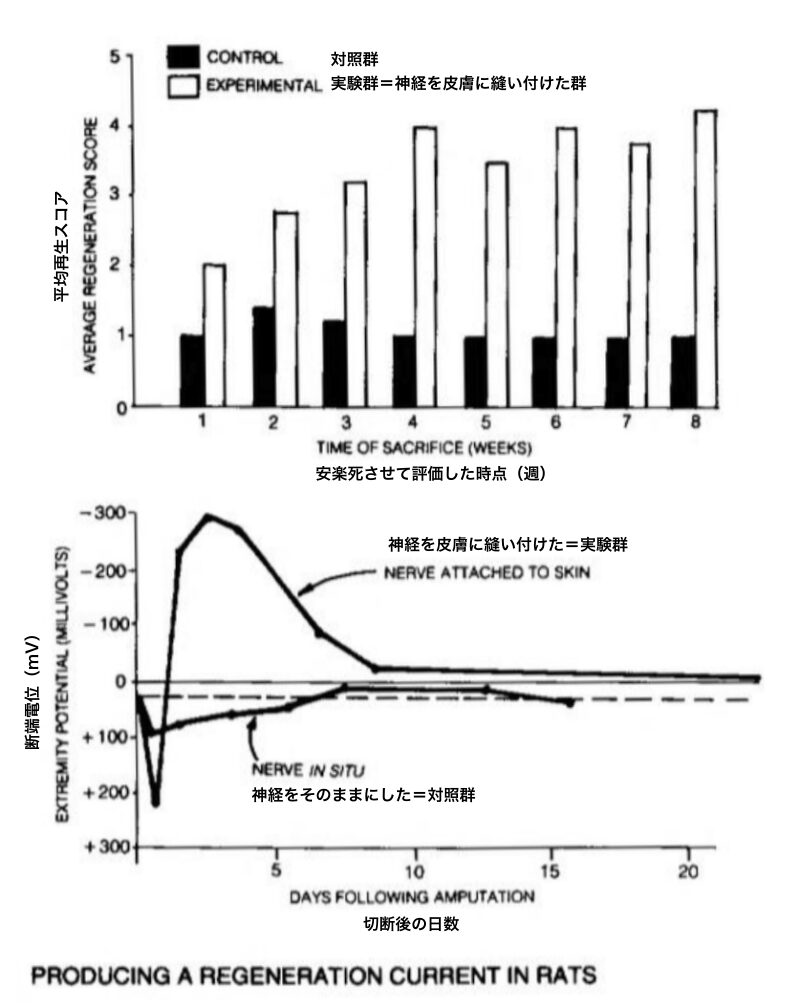
※上の図は、→ 切断後、安楽死させて組織を評価した週。何週目にどれだけ再生が進んでいたかを比較するグラフ
下の図は、→ 切断後、生きている状態で 電位を測定した日数
一口メモ:神経─表皮接合部を人工的に作ることで、哺乳類でも再生電流を誘導でき、その電流が骨の再生を促進するというベッカーの大発見を示す図。
この図が重要な理由:
・哺乳類(ラット)でも再生電流を人工的に作れる
・その電流が実際に骨の再生を促進する
・つまり、再生のスイッチは電気
・しかも、神経だけでなく表皮も回路の一部
・これはベッカーの理論を大きく前進させた
しかし、別の実験では、大きな障害[再生可能な細胞が存在しない場所があるという理論上の大問題]が明らかになった。別のラットの群において、私たちは神経─表皮接合部を、切断断端の先端ではなく、脚の側面に形成した。そこでも同じ "再生"に伴う電気的変化を測定したが、何も起こらなかった。成長は見られなかった。これは、この部位には感受性細胞─電流に反応して脱分化できる細胞が存在しなかったことを意味していた。哺乳類においては、そのような細胞は骨髄にのみ存在し、特に成体動物においては、再生の原料となる細胞の数は極めて少ないようだった。
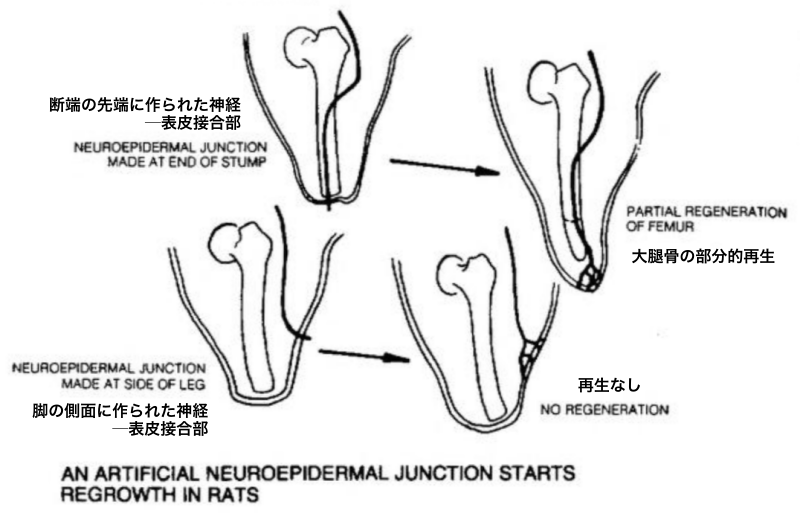
※再生には"電流"だけでなく"再生可能な細胞"が存在する場所であることが必須
これが、どのラットにおいても完全な再成長が得られなかった理由を説明していた。この結果は、芽体が不十分だったことを示していた。骨髄には、脚全体を作り出すのに十分な大きさの芽体を形成できるほど、感受性のある細胞が十分に存在しなかった。したがって、人間で四肢を完全に再生させる見通しは、きわめて暗いものに思われた─もし他の細胞を電気的に感受性のある状態にし、未分化の芽体細胞へと変換する方法を見いだせないかぎりは。
幸いなことに、次の章で述べる全く別の問題に取り組んでいる最中に、私たちはまさにそれを実現する方法を偶然見つけ出した。
──つづく
最後までお読みいただき、ありがとうございました。
【引用について】
出典(URL)を明記していただければ引用を歓迎します。
記事全体の無断転載・翻訳部分の全文転載はご遠慮ください。
引用についての詳細はこちら → 引用ガイドライン